Układ oddechowy dostarcza tlen do krwi i usuwa z niej dwutlenek węgla. Składają się na to wentylacja, przepływ krwi przez płuca, dyfuzja i transport gazów oraz ich nerwowa regulacja.
Mechanika oddychania
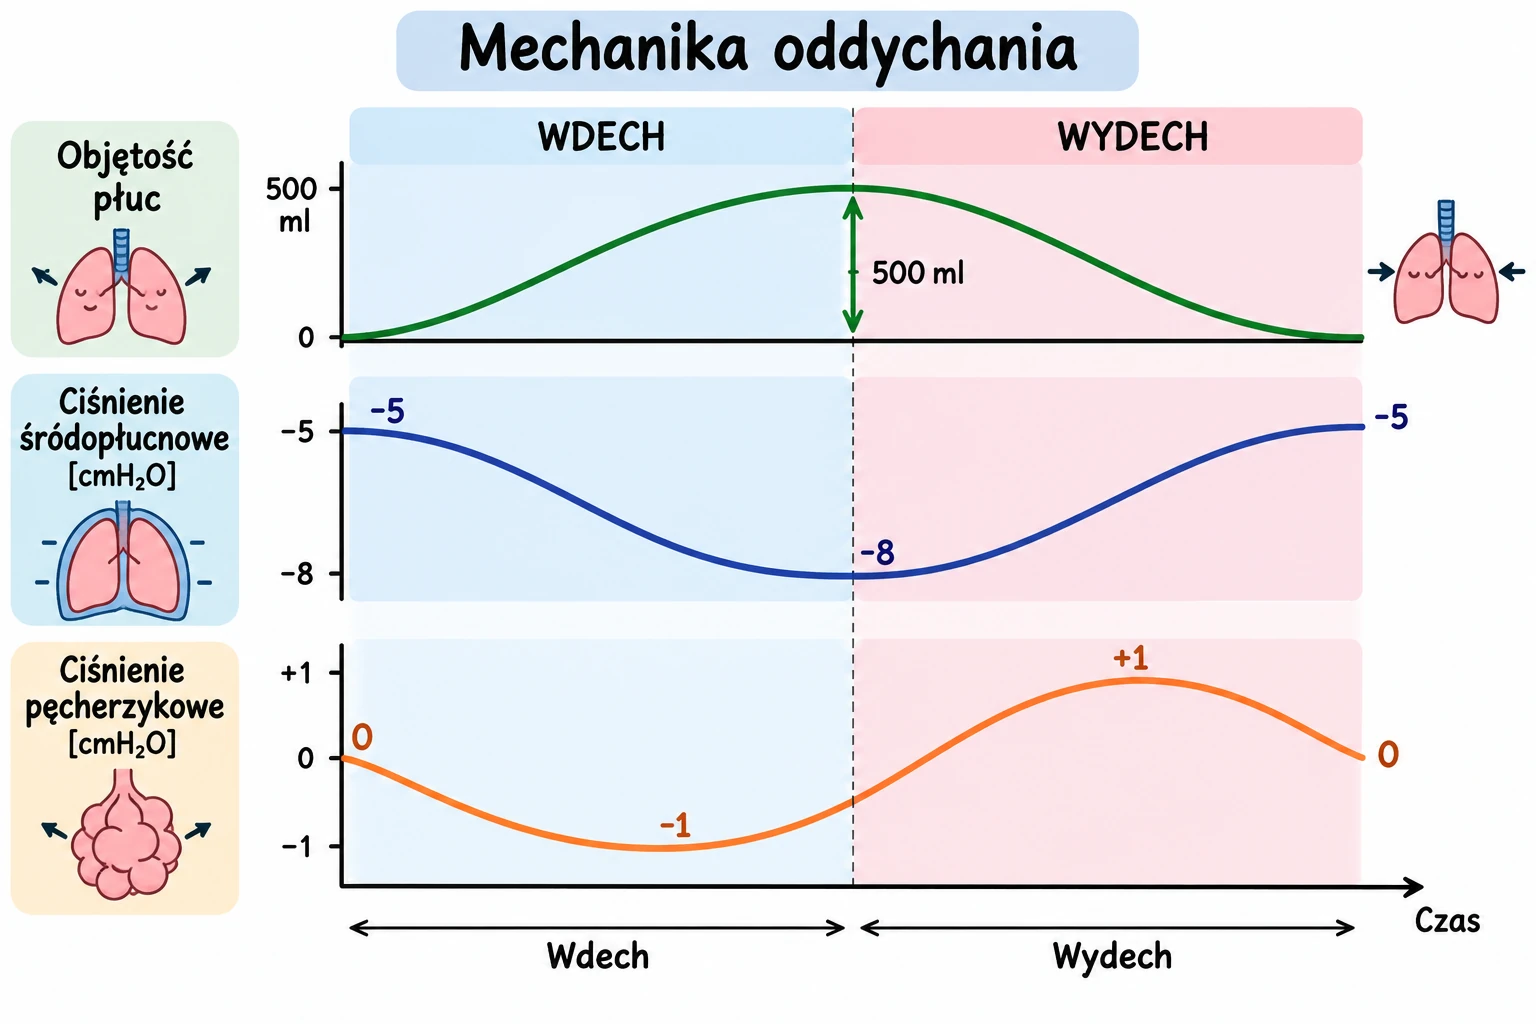
Powietrze przepływa zawsze od ciśnienia wyższego do niższego. Aby nastąpił wdech, ciśnienie w pęcherzykach musi spaść poniżej atmosferycznego. Wdech jest procesem czynnym. Główny mięsień wdechowy to przepona, unerwiana przez nerw przeponowy (segmenty C3-C5). Pomagają jej mięśnie międzyżebrowe zewnętrzne.
Płuca i ściana klatki piersiowej działają jak dwie przeciwstawne sprężyny. Płuca dążą do zapadnięcia się, a klatka do rozprężenia. Na końcu spokojnego wydechu siły te się równoważą - płuca mają wtedy objętość równą czynnościowej pojemności zalegającej (FRC). W jamie opłucnej panuje wówczas ciśnienie ujemne, ok. -5 cmH2O. W czasie wdechu spada ono do ok. -8 cmH2O. Ciśnienie pęcherzykowe obniża się o ok. 1 cmH2O i powietrze napływa do płuc. Różnica między ciśnieniem pęcherzykowym a śródopłucnowym to ciśnienie transpulmonalne, które utrzymuje płuca rozprężone.
Spokojny wydech jest bierny i wynika z elastycznego powrotu płuc i klatki. Wydech nasilony angażuje mięśnie brzucha i międzyżebrowe wewnętrzne. W duszności pracują też dodatkowe mięśnie wdechowe, np. mostkowo-obojczykowo-sutkowe. W odmie ciśnienie śródopłucnowe wyrównuje się z atmosferycznym i płuco zapada się pod wpływem własnej sprężystości.
Podatność płuc i surfaktant
Podatność płuc to zmiana objętości przypadająca na zmianę ciśnienia (ΔV/ΔP). U zdrowego dorosłego wynosi ok. 200 ml/cmH2O. Niska podatność oznacza płuca sztywne, jak w zwłóknieniu, obrzęku płuc, ARDS czy przy niedoborze surfaktantu. Pacjent oddycha wtedy szybko i płytko. W rozedmie zniszczenie włókien sprężystych zwiększa podatność. Wdech jest łatwy, ale słaby odrzut sprężysty utrudnia wydech i sprzyja zaleganiu powietrza.
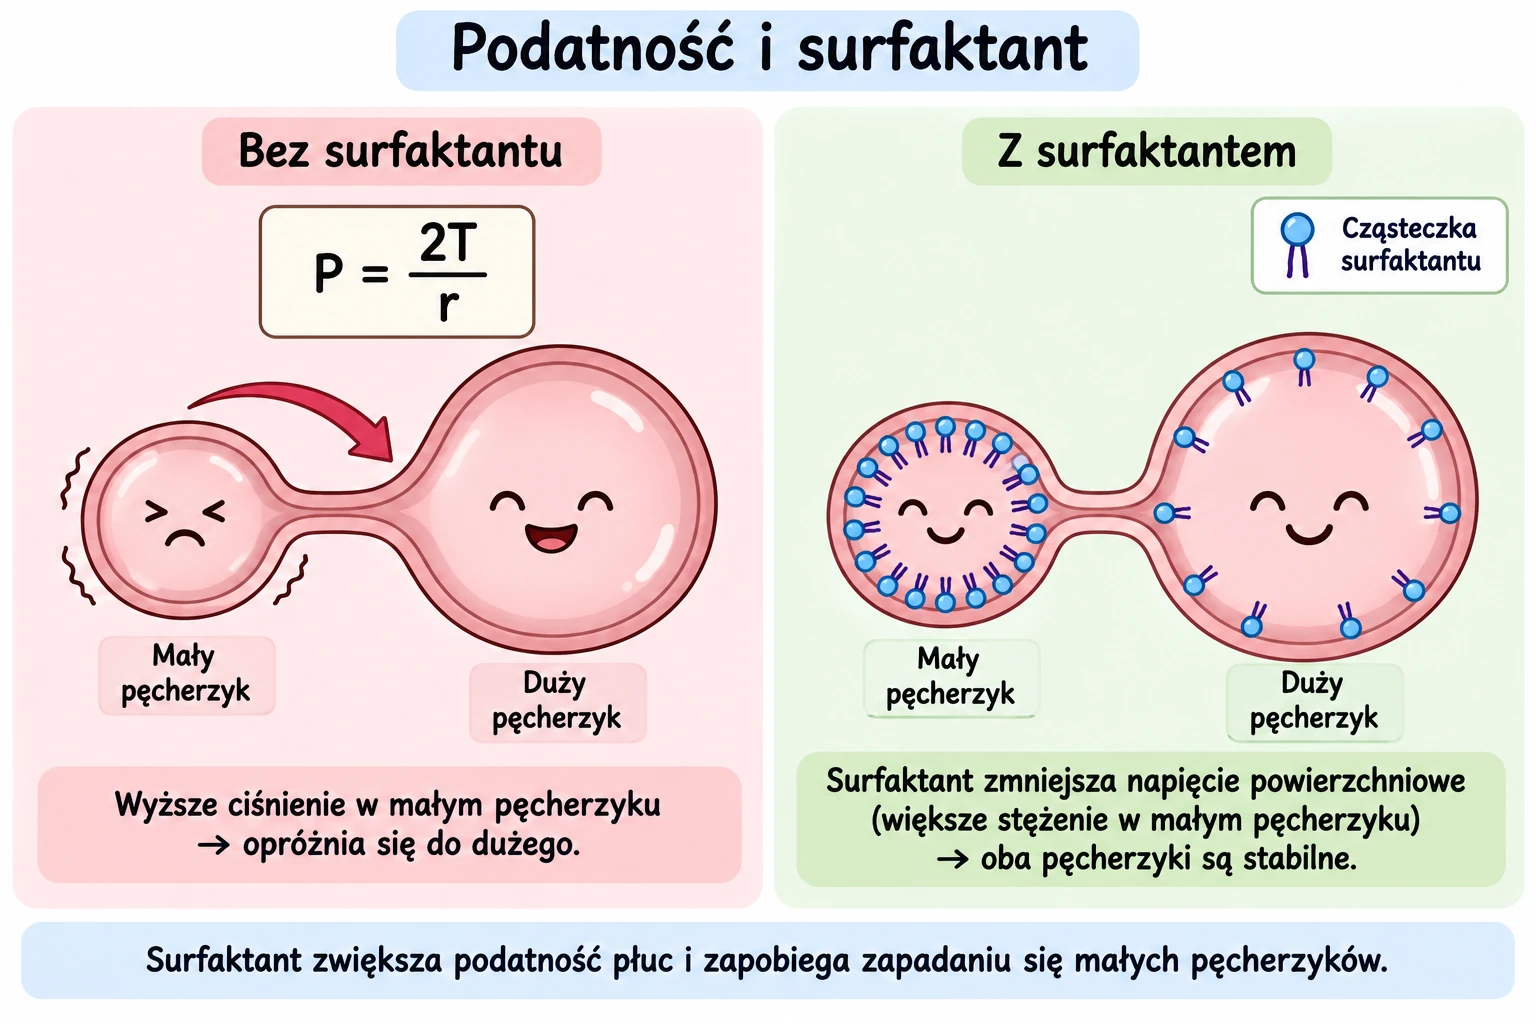
Ok. dwóch trzecich sił sprężystych płuc pochodzi z napięcia powierzchniowego płynu wyściełającego pęcherzyki. Zgodnie z prawem Laplace'a ciśnienie zapadające pęcherzyk wynosi P = 2T/r. Przy tym samym napięciu mały pęcherzyk ma więc wyższe ciśnienie i opróżniałby się do dużego. Zapobiega temu surfaktant, wytwarzany przez pneumocyty typu II. Surfaktant obniża napięcie powierzchniowe, tym silniej, im mniejszy pęcherzyk, bo przy zmniejszaniu powierzchni jego cząsteczki się zagęszczają. Stabilizuje w ten sposób pęcherzyki, zapobiega niedodmie i zwiększa podatność.
Dojrzałą ilość surfaktantu płuca osiągają ok. 34-35 tygodnia ciąży. U wcześniaków jego niedobór powoduje zespół zaburzeń oddychania (RDS). Glikokortykosteroidy podane matce przed porodem przyspieszają dojrzewanie płuc.
Drugim składnikiem pracy oddechowej jest opór dróg oddechowych. Zgodnie z prawem Poiseuille'a opór jest odwrotnie proporcjonalny do czwartej potęgi promienia. Zwężenie oskrzela o połowę zwiększa więc opór szesnastokrotnie. Pobudzenie receptorów β2 rozkurcza oskrzela, a nerw błędny przez receptory muskarynowe je kurczy.
Spirometria i wentylacja płuc
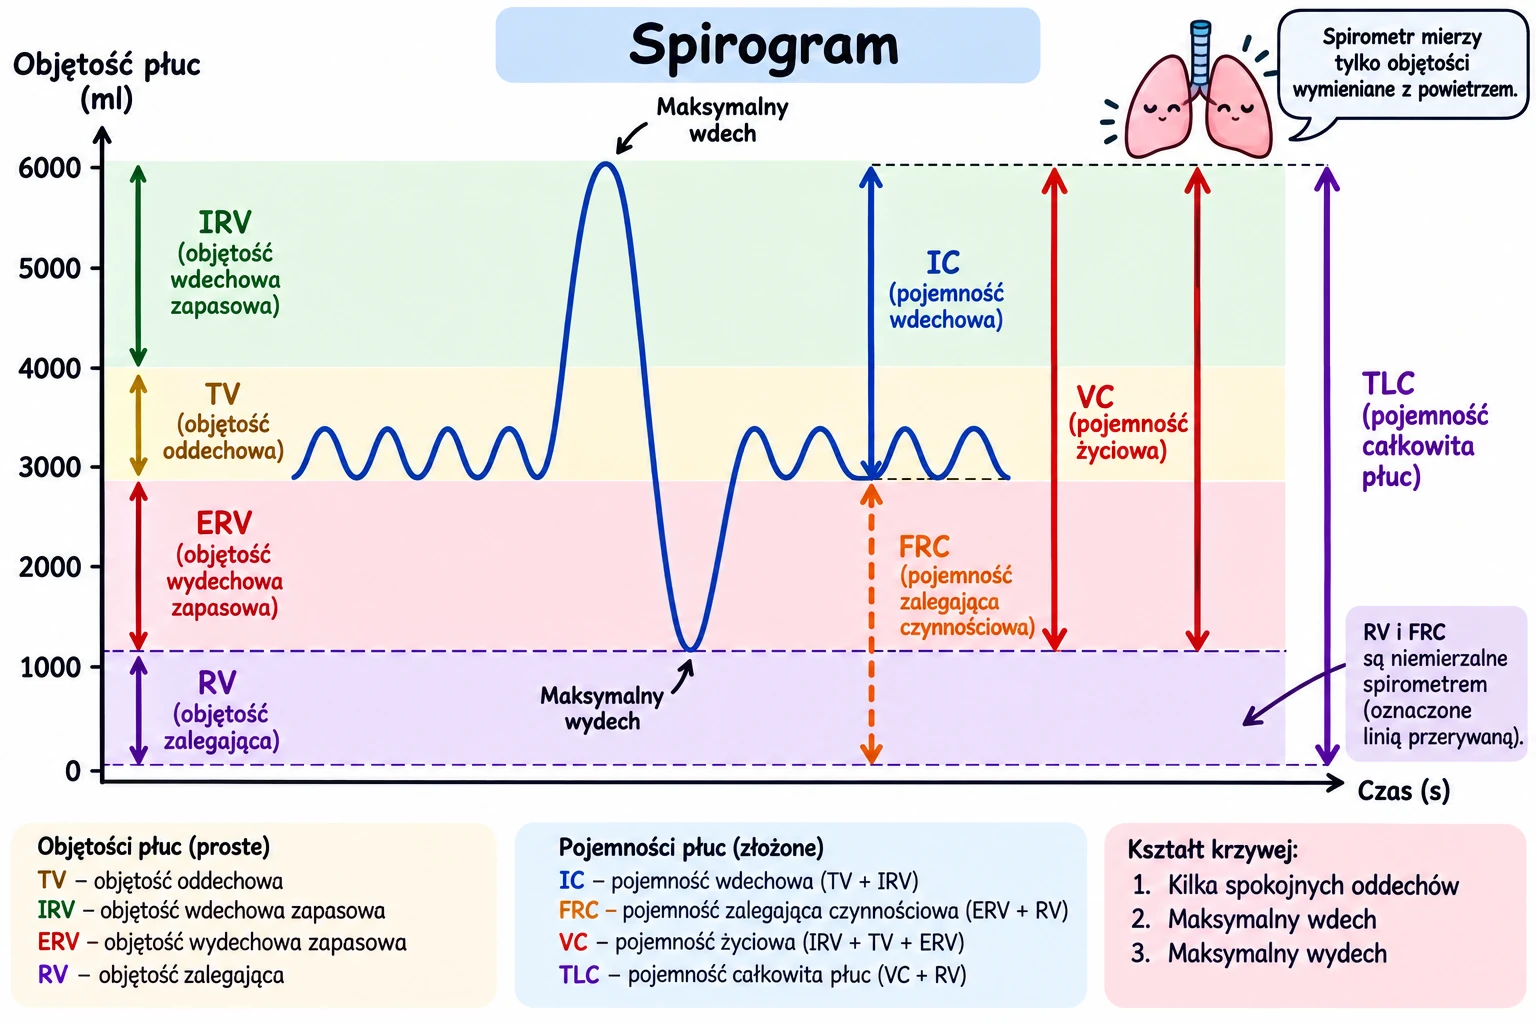
Objętości płuc u młodego mężczyzny wynoszą orientacyjnie:
objętość oddechowa (TV) - ok. 500 ml,
zapasowa objętość wdechowa (IRV) - ok. 3000 ml,
zapasowa objętość wydechowa (ERV) - ok. 1100 ml,
objętość zalegająca (RV) - ok. 1200 ml.
Pojemności są sumami objętości. Pojemność wdechowa (IC) to TV + IRV. Czynnościowa pojemność zalegająca (FRC) to ERV + RV, ok. 2300 ml. Pojemność życiowa (VC) to IRV + TV + ERV, ok. 4600 ml. Całkowita pojemność płuc (TLC) to VC + RV, ok. 5800 ml. Spirometr nie zmierzy RV ani zawierających ją FRC i TLC - do tego służy np. pletyzmografia.
W próbie natężonego wydechu ocenia się natężoną pojemność życiową (FVC) i natężoną objętość wydechową pierwszosekundową (FEV1). U zdrowej osoby w pierwszej sekundzie wydmuchuje się ponad 70% FVC. W obturacji, np. w astmie i POChP, rośnie opór dróg oddechowych. FEV1 spada wtedy bardziej niż FVC i wskaźnik FEV1/FVC się obniża. W restrykcji, np. w zwłóknieniu czy deformacji klatki, zmniejsza się objętość płuc. FEV1 i FVC spadają wtedy proporcjonalnie, a wskaźnik pozostaje prawidłowy.
FRC jest rezerwuarem tlenu między oddechami. W pozycji leżącej, w otyłości i w ciąży trzewia przesuwają przeponę ku górze i FRC się zmniejsza. Dlatego tacy pacjenci szybciej desaturują w czasie bezdechu, np. przy intubacji.
Wentylacja minutowa, pęcherzykowa i przestrzeń martwa
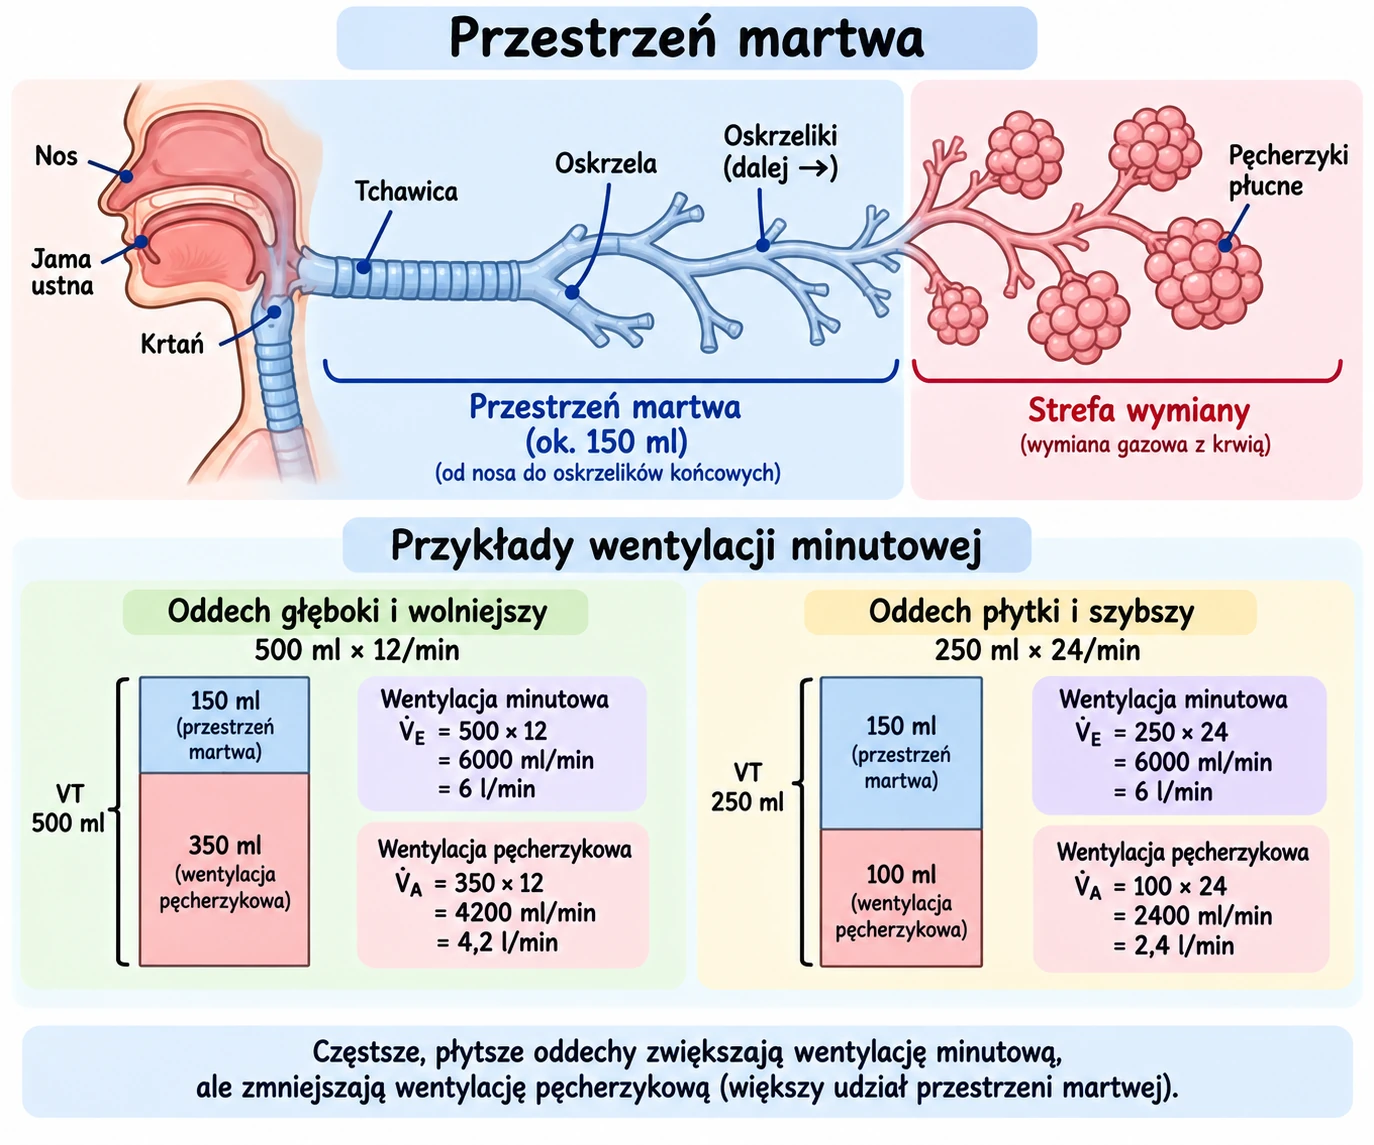
Wentylacja minutowa (VE) to iloczyn objętości oddechowej i częstości oddechów: 500 ml × 12/min = 6 l/min. Nie całe to powietrze bierze udział w wymianie gazowej. Ok. 150 ml (orientacyjnie 2 ml/kg) wypełnia drogi przewodzące, od nosa do oskrzelików końcowych. To anatomiczna przestrzeń martwa. Razem z pęcherzykami wentylowanymi, ale nieperfundowanymi, tworzy fizjologiczną przestrzeń martwą.
Wentylacja pęcherzykowa to VA = (VT - VD) × f. W przykładzie wynosi (500 - 150) × 12 = 4,2 l/min. Przy oddechu płytkim i szybkim, np. 250 ml × 24/min, wentylacja minutowa nadal wynosi 6 l/min. Wentylacja pęcherzykowa spada jednak do (250 - 150) × 24 = 2,4 l/min. Oddech wolny i głęboki jest więc wydajniejszy.
PaCO2 jest odwrotnie proporcjonalne do wentylacji pęcherzykowej przy stałej produkcji CO2. Dwukrotny wzrost VA obniża PaCO2 o połowę, a dwukrotny spadek je podwaja. Dlatego PaCO2 najlepiej odzwierciedla skuteczność wentylacji.
Krążenie płucne
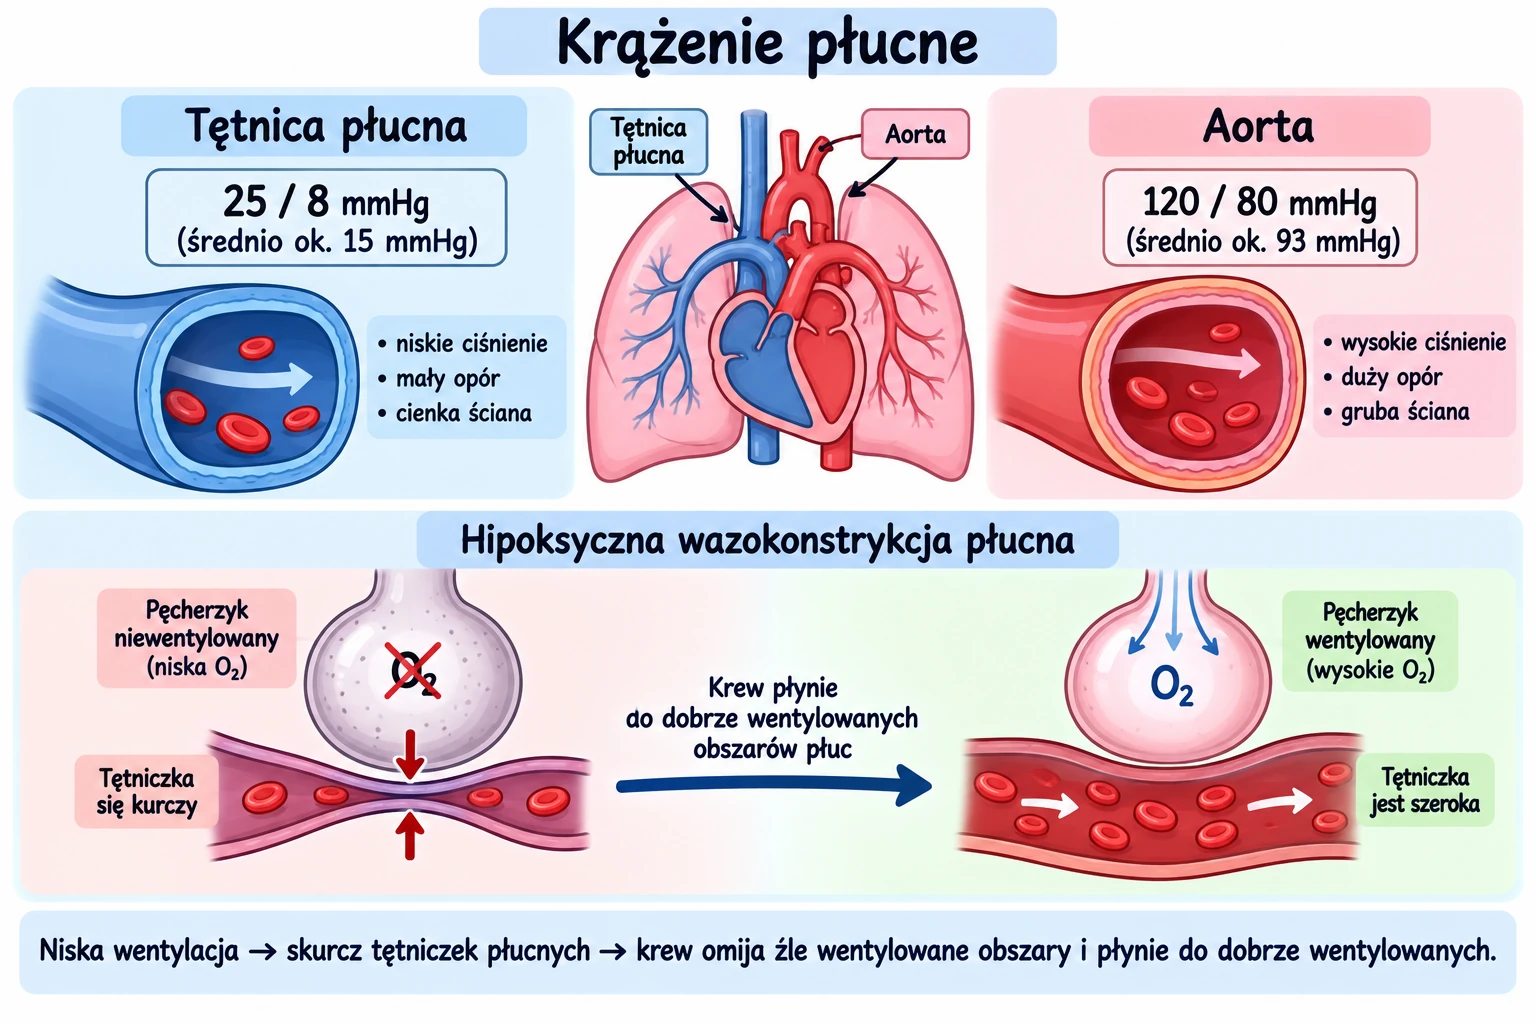
Przez płuca przepływa cały rzut prawej komory, tyle samo krwi co przez krążenie duże. Jest to jednak układ niskociśnieniowy. Ciśnienie w tętnicy płucnej wynosi ok. 25/8 mmHg, średnio ok. 15 mmHg. Opór naczyń płucnych stanowi ok. jednej dziesiątej oporu systemowego. Gdy rzut serca rośnie, np. w wysiłku, opór płucny spada, bo otwierają się dotąd nieprzepływane naczynia i rozszerzają się pozostałe. Ciśnienie w tętnicy płucnej rośnie wtedy niewiele.
Śródbłonek płucny zawiera dużo konwertazy angiotensyny, przekształcającej angiotensynę I w II.
Najważniejszą cechą naczyń płucnych jest hipoksyczny skurcz naczyń. W krążeniu dużym niedotlenienie rozszerza naczynia. W płucach jest odwrotnie - tętniczki przy słabo wentylowanych pęcherzykach kurczą się. Krew kierowana jest do dobrze wentylowanych obszarów, co poprawia utlenowanie. Gdy hipoksja obejmuje całe płuca, np. w POChP lub na dużej wysokości, skurcz jest uogólniony. Rośnie wtedy ciśnienie płucne, a z czasem przerasta prawa komora (serce płucne).
Płyn w naczyniach płucnych podlega prawom Starlinga. Gdy ciśnienie włośniczkowe przekroczy ok. 20-25 mmHg, np. w niewydolności lewej komory, filtracja przerasta możliwości odpływu chłonki. Rozwija się obrzęk płuc.
Dalsza część artykułu jest dostępna w pakiecie
W pakiecie znajdziesz także pytania egzaminacyjne z wyjaśnieniami do tego tematu.
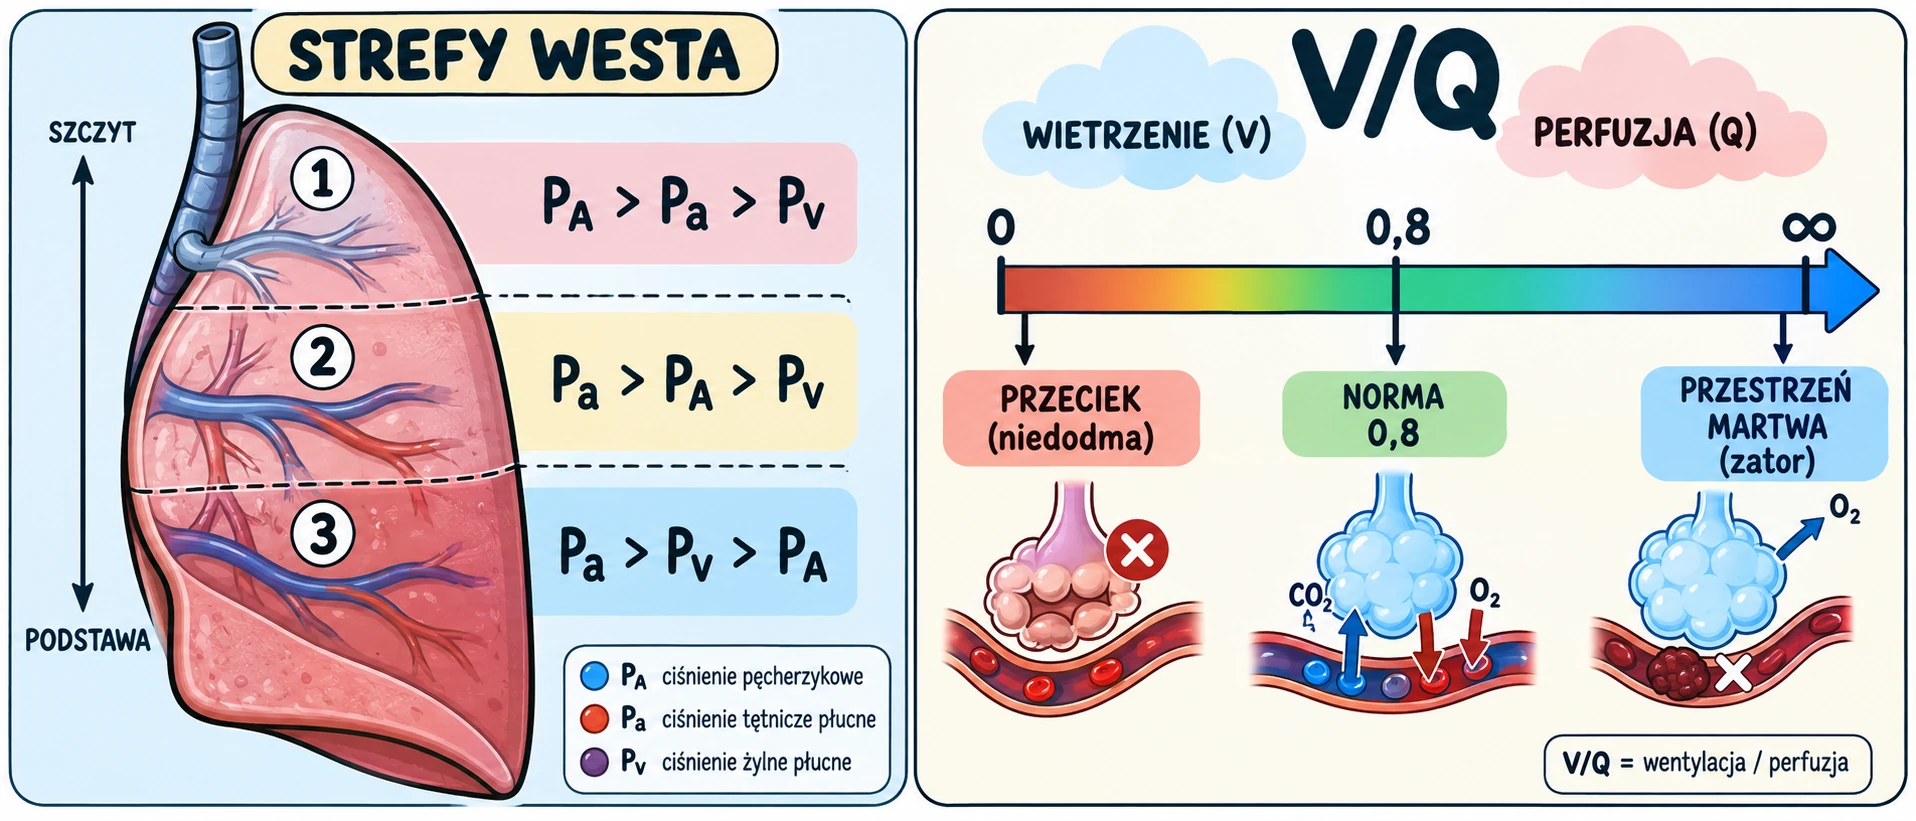
Wymiana gazowa jest wydajna tylko wtedy, gdy wentylacja pasuje do przepływu krwi. Dla całych płuc wentylacja pęcherzykowa wynosi ok. 4 l/min, a przepływ ok. 5 l/min. Stosunek V/Q wynosi więc ok. 0,8. W pozycji pionowej grawitacja sprawia, że zarówno wentylacja, jak i perfuzja rosną ku podstawom płuc. Perfuzja rośnie jednak znacznie silniej. Szczyty mają więc wysoki V/Q, a podstawy niski.
West opisał trzy strefy przepływu. W strefie 1 ciśnienie pęcherzykowe przewyższa tętnicze i przepływu nie ma. W zdrowych płucach praktycznie nie występuje, pojawia się np. przy hipotensji. W strefie 2 przepływ zależy od różnicy ciśnienia tętniczego i pęcherzykowego. W strefie 3, u podstaw, przepływ jest ciągły.
Dwa skrajne zaburzenia to przeciek i przestrzeń martwa. Przeciek (V/Q = 0) to obszar perfundowany, ale niewentylowany, jak w niedodmie, zapaleniu płuc czy obrzęku płuc. Krew przepływa tam bez utlenowania, a hipoksemia słabo reaguje na zwiększenie stężenia tlenu. Przestrzeń martwa (V/Q = ∞) to obszar wentylowany, ale nieperfundowany, klasycznie w zatorowości płucnej. Obszary o obniżonym V/Q to najczęstsza przyczyna hipoksemii. W odróżnieniu od przecieku dobrze reagują na tlenoterapię.
Z tych zasad wynika ułożenie pacjenta z jednostronnym zapaleniem płuc - na boku, zdrowym płucem w dół. Grawitacja kieruje wtedy większość krwi do płuca dobrze wentylowanego.
Wymiana i transport gazów
Gazy przechodzą przez barierę pęcherzykowo-włośniczkową na drodze dyfuzji. Zgodnie z prawem Ficka dyfuzja jest proporcjonalna do powierzchni (ok. 70 m2) i różnicy ciśnień parcjalnych. Jest też odwrotnie proporcjonalna do grubości bariery. CO2 dyfunduje ok. 20 razy łatwiej niż tlen. Dlatego pogrubienie bariery, np. w zwłóknieniu, daje najpierw hipoksemię, a nie hiperkapnię.
Na poziomie morza ciśnienie parcjalne tlenu w powietrzu wynosi ok. 160 mmHg. W pęcherzykach spada do ok. 100 mmHg przez nawilżenie powietrza i domieszkę CO2. We krwi tętniczej PaO2 wynosi ok. 95 mmHg, a w żylnej ok. 40 mmHg.
Ok. 98% tlenu jest związane z hemoglobiną. 1 g hemoglobiny wiąże ok. 1,34 ml O2, a tlen rozpuszczony w osoczu ma znaczenie marginalne. Zawartość tlenu zależy więc głównie od stężenia hemoglobiny i jej wysycenia. W niedokrwistości PaO2 i SaO2 są prawidłowe, ale krew przenosi mniej tlenu.
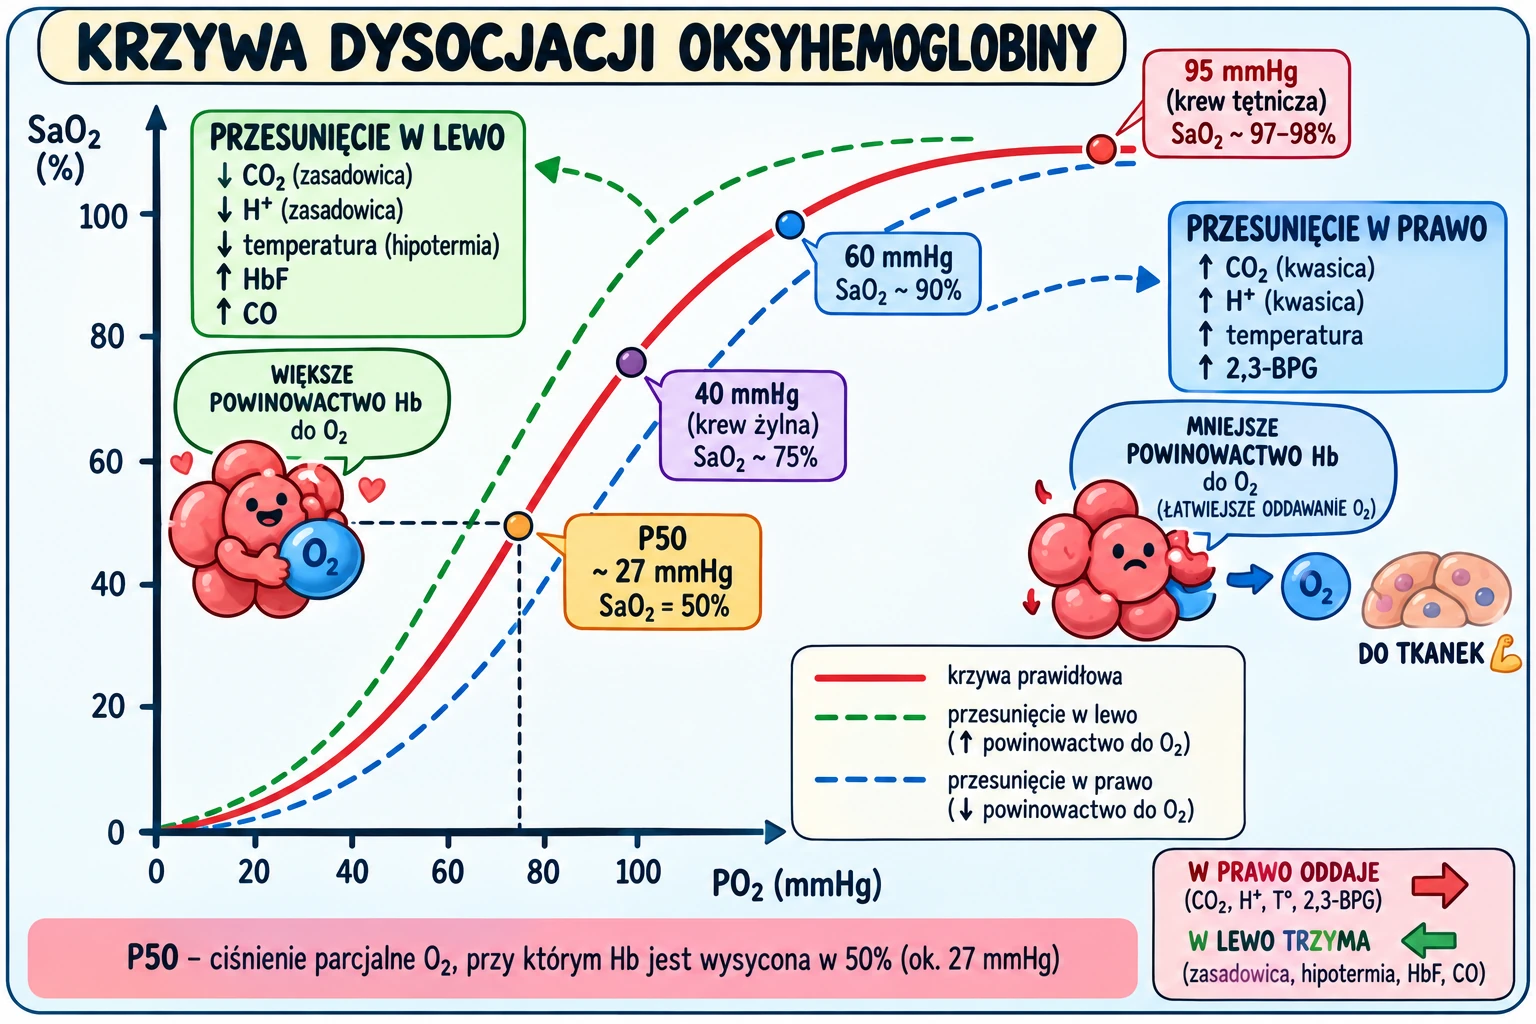
Krzywa dysocjacji oksyhemoglobiny ma kształt litery S. Powyżej PaO2 ok. 60 mmHg (SaO2 ok. 90%) jest płaska, co daje margines bezpieczeństwa. Poniżej tej wartości wysycenie spada gwałtownie. Przesunięcie krzywej w prawo oznacza mniejsze powinowactwo hemoglobiny do tlenu i łatwiejsze jego oddawanie. Wywołują je wzrost PCO2 i stężenia H+ (efekt Bohra), wzrost temperatury i 2,3-BPG, czyli warunki w pracującym mięśniu. Przesunięcie w lewo powodują zasadowica, hipotermia, hemoglobina płodowa i tlenek węgla. CO wiąże się z hemoglobiną ok. 200-250 razy silniej niż tlen i utrudnia oddawanie pozostałego tlenu. Pulsoksymetr nie odróżnia karboksyhemoglobiny od oksyhemoglobiny i zawyża wynik.
CO2 jest transportowany w ok. 70% jako wodorowęglan. Powstaje on w erytrocytach dzięki anhydrazie węglanowej, a do osocza przechodzi w zamian za chlorki (przesunięcie chlorkowe). Ok. 20% CO2 wiąże się z białkami jako karbaminiany, a reszta jest rozpuszczona. Odtlenowana hemoglobina wiąże więcej CO2 i H+ - to efekt Haldane'a.
Regulacja oddychania
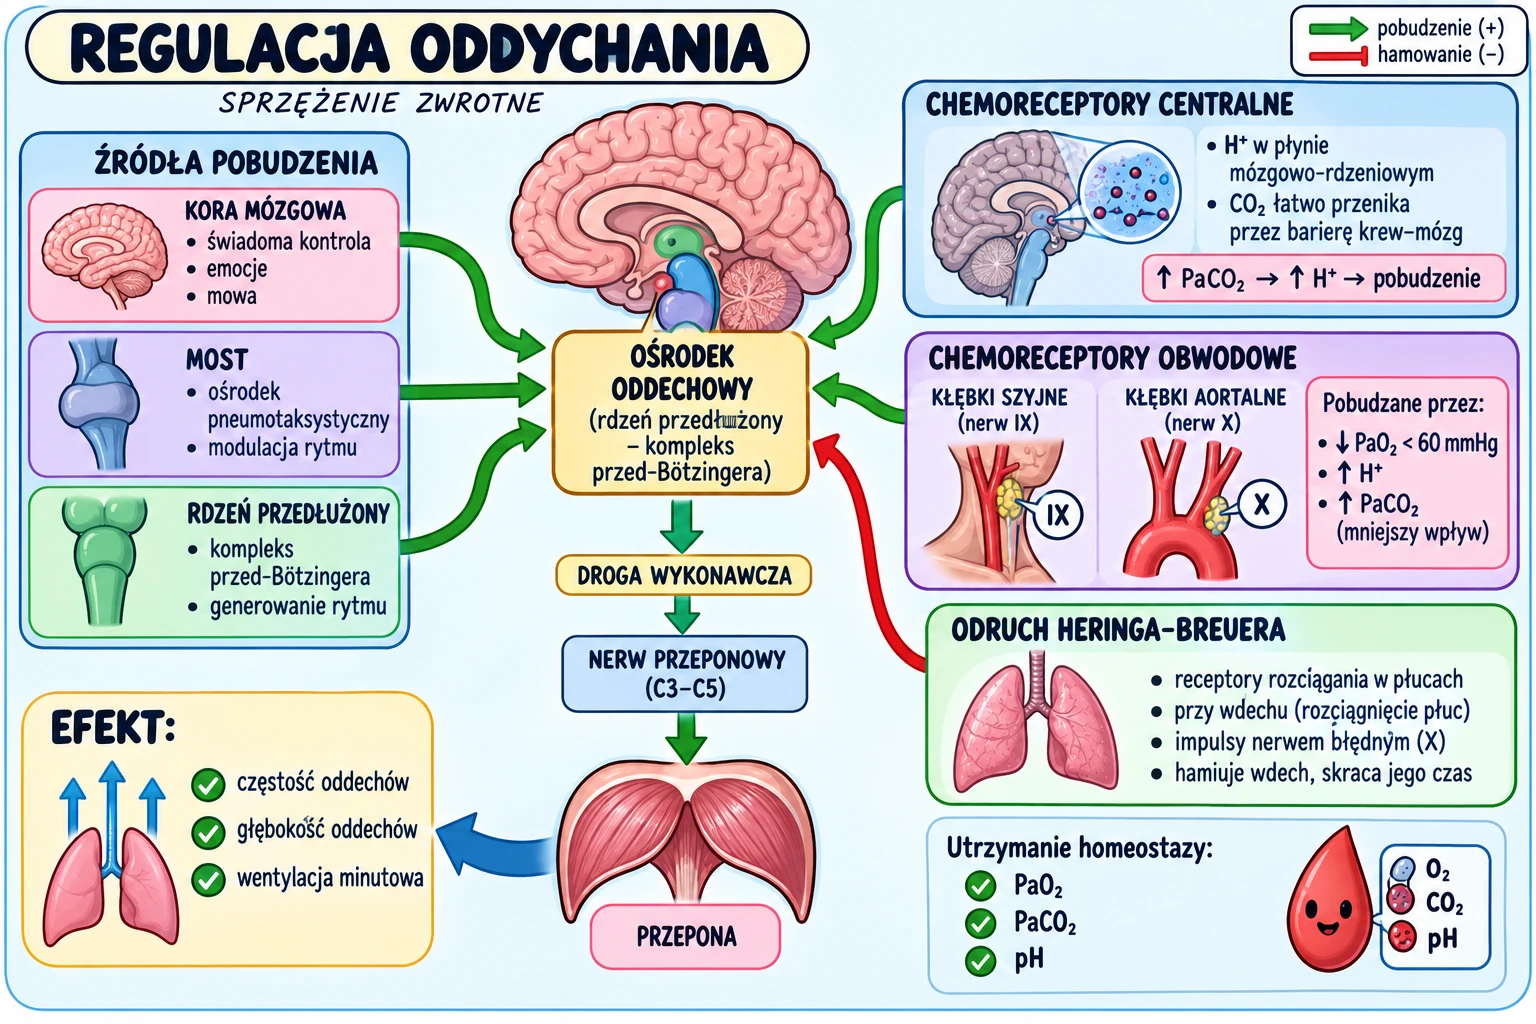
Rytm oddechowy powstaje w rdzeniu przedłużonym, w kompleksie przed-Bötzingera. Ośrodki mostu skracają wdech, a kora pozwala dowolnie zmieniać oddech, np. przy mowie.
Chemoreceptory centralne leżą na brzusznej powierzchni rdzenia przedłużonego. Reagują na stężenie jonów H+ w płynie mózgowo-rdzeniowym. CO2 łatwo przenika przez barierę krew-mózg, a H+ i HCO3- nie. Dlatego receptory te reagują pośrednio na zmiany PaCO2. PaCO2 jest w warunkach prawidłowych głównym bodźcem regulującym oddychanie.
Chemoreceptory obwodowe to kłębki szyjne (nerw językowo-gardłowy) i aortalne (nerw błędny). Tylko one wykrywają hipoksemię. Wyraźnie pobudzają oddychanie dopiero przy PaO2 poniżej ok. 60 mmHg. Reagują też na wzrost PaCO2 i spadek pH, np. w kwasicy metabolicznej. Wykrywają spadek ciśnienia parcjalnego tlenu, a nie jego zawartości. Niedokrwistość czy zatrucie CO nie pobudzają ich silnie.
W przewlekłej hiperkapnii, np. w zaawansowanej POChP, nerki zatrzymują wodorowęglany i pH płynu mózgowo-rdzeniowego wraca do normy. Chemoreceptory centralne słabiej reagują wtedy na CO2, a większą rolę odgrywa bodziec hipoksemiczny. Nadmierna tlenoterapia może u takich chorych nasilić hiperkapnię. Dzieje się tak głównie przez zniesienie hipoksycznego skurczu naczyń i efekt Haldane'a, a mniej przez osłabienie napędu. Dlatego docelowa SpO2 wynosi u nich zwykle 88-92%.
Receptory rozciągania w oskrzelach przez nerw błędny hamują wdech przy dużym rozdęciu płuc (odruch Heringa-Breuera). Hiperwentylacja obniża PaCO2 i wywołuje zasadowicę oddechową. Spadek wapnia zjonizowanego daje parestezje i tężyczkę. Hiperwentylacja przed nurkowaniem na wstrzymanym oddechu jest niebezpieczna. Obniża zapas CO2, więc przymus oddechu pojawia się później, a utrata przytomności z niedotlenienia może nastąpić wcześniej.
Oddychanie a wysiłek fizyczny
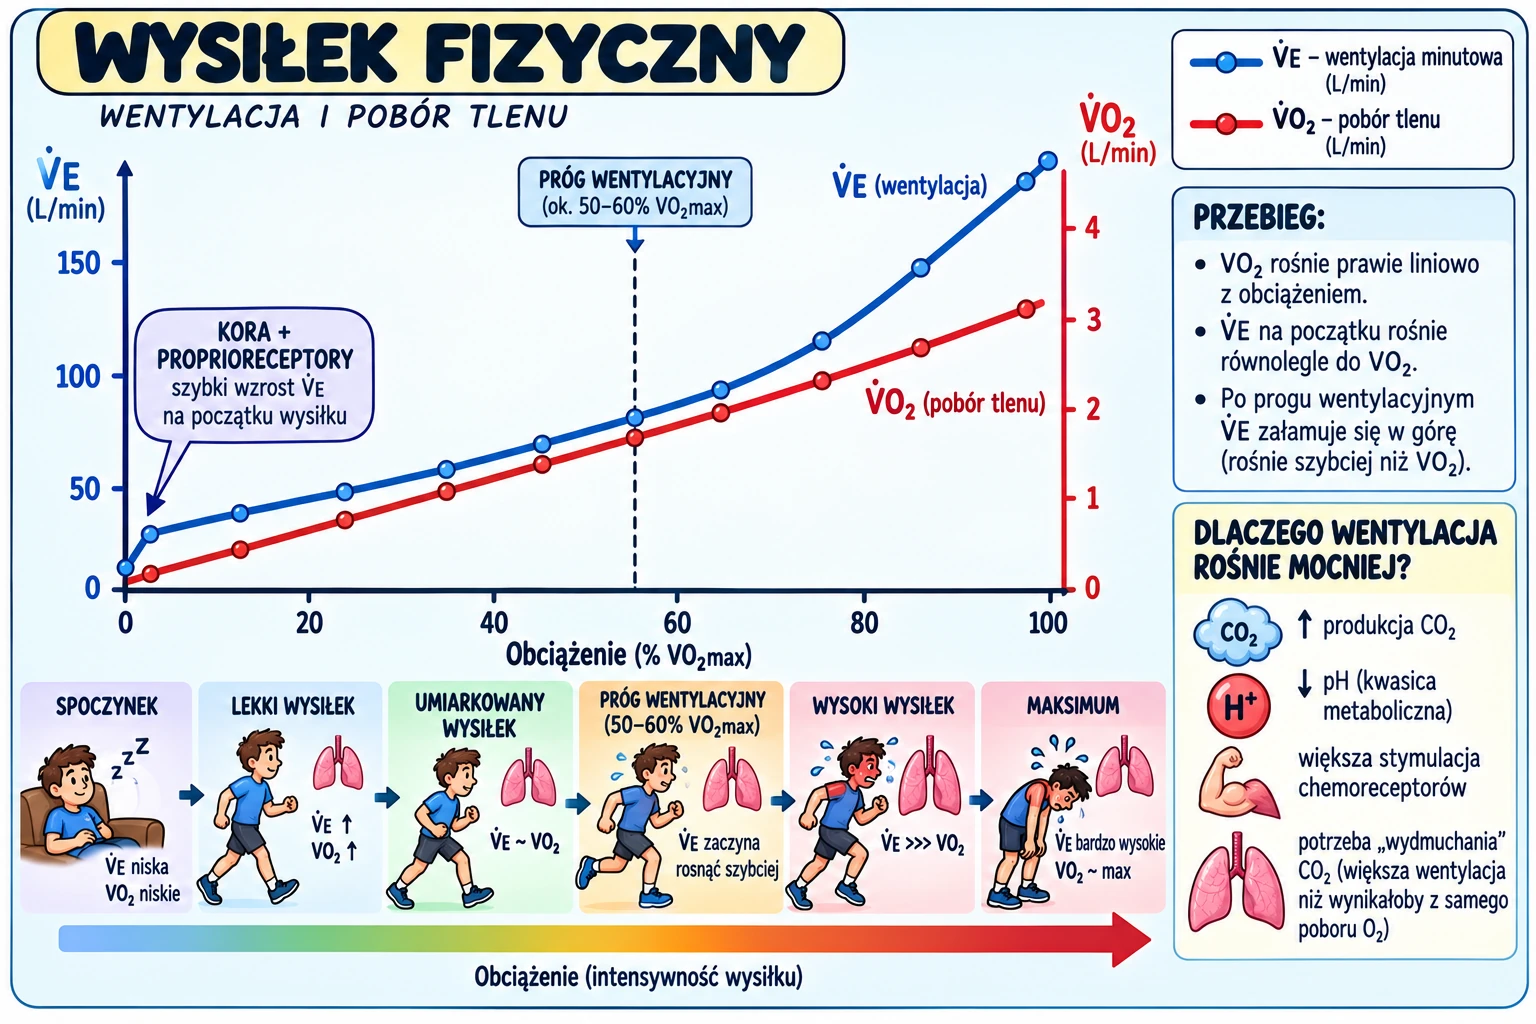
W czasie wysiłku wentylacja minutowa rośnie z ok. 6 l/min do ponad 100 l/min. Najpierw zwiększa się objętość oddechowa, potem częstość oddechów. Wentylacja rośnie skokowo już w pierwszych sekundach, zanim zmieni się skład krwi. To efekt pobudzenia z kory ruchowej i proprioreceptorów. W wysiłku umiarkowanym PaO2, PaCO2 i pH pozostają niemal niezmienione. Chemoreceptory nie tłumaczą więc całej reakcji.
Zużycie tlenu w spoczynku wynosi ok. 250 ml/min, czyli ok. 3,5 ml/kg/min (1 MET). Maksymalne zużycie tlenu (VO2max) u osoby niewytrenowanej sięga ok. 3 l/min, u sportowców wytrzymałościowych ponad 5 l/min. U zdrowych VO2max ogranicza głównie rzut serca, a nie płuca. Nawet przy maksymalnym wysiłku pozostaje rezerwa wentylacyjna. W pracujących mięśniach wzrost temperatury, PCO2 i H+ przesuwa krzywą dysocjacji w prawo. Rośnie wtedy różnica tętniczo-żylna tlenu.
Powyżej progu wentylacyjnego, u niewytrenowanych ok. 50-60% VO2max, przyrasta produkcja mleczanu. Jony H+ są buforowane przez wodorowęglany, co wytwarza dodatkowy CO2. Wentylacja rośnie wtedy szybciej niż zużycie tlenu, a PaCO2 spada. Trening przesuwa próg ku wyższym obciążeniom i zmniejsza wentylację przy danym wysiłku.
Hipoksja i adaptacja do dużych wysokości
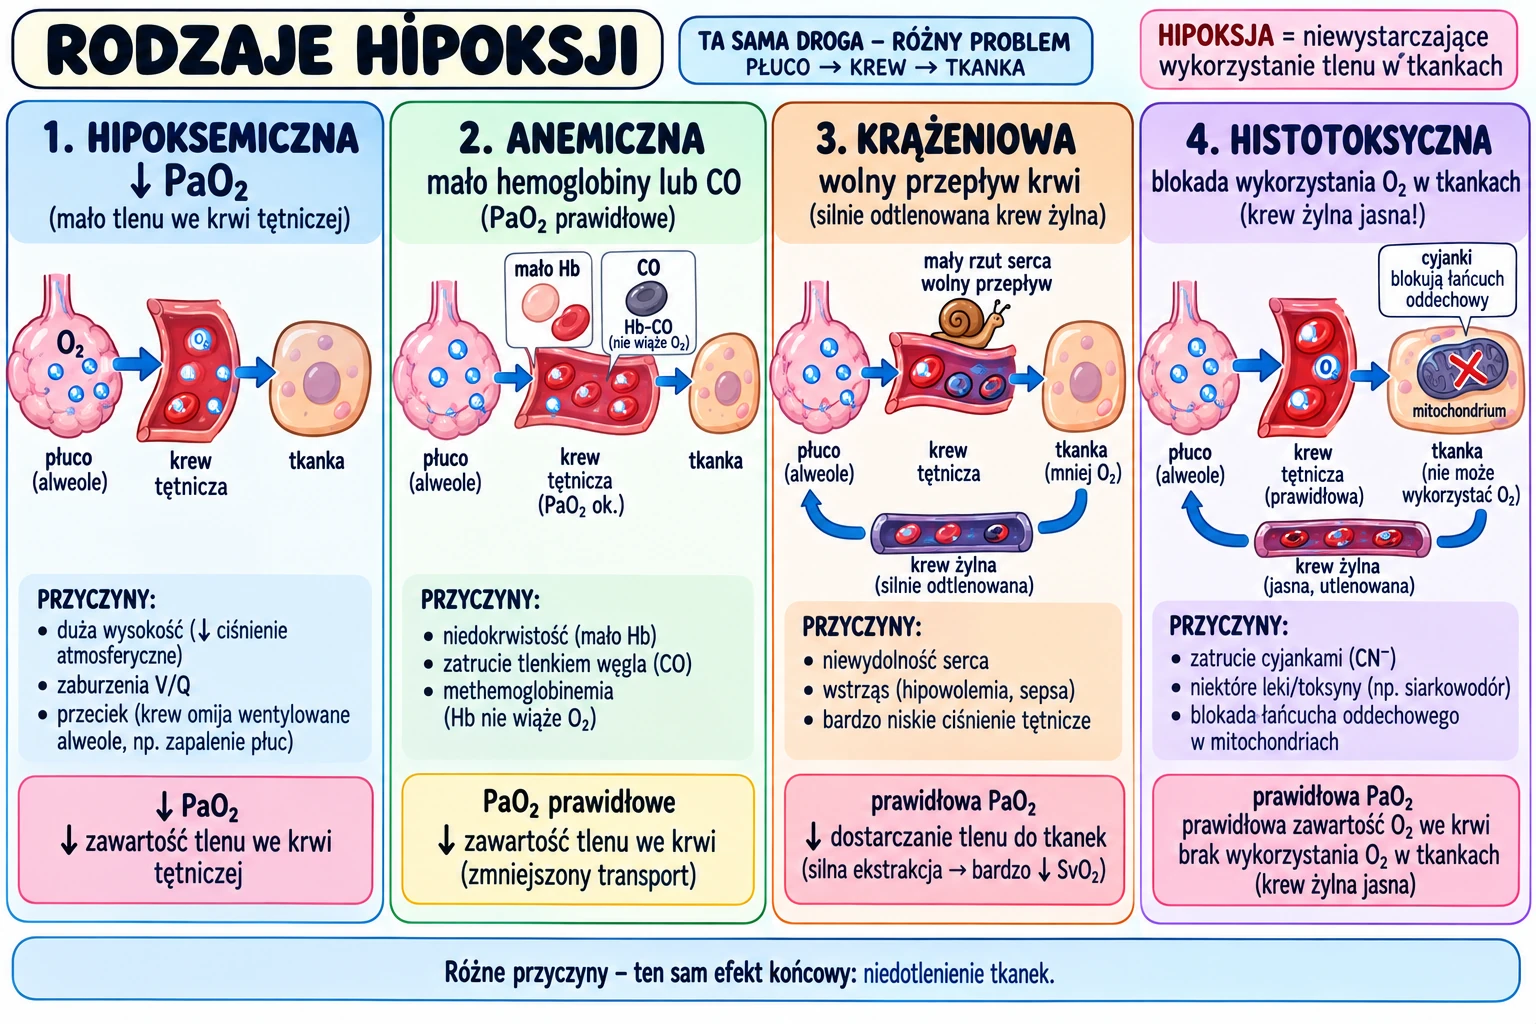
Hipoksja to niedobór tlenu w tkankach. Wyróżnia się jej cztery rodzaje. Hipoksja hipoksemiczna oznacza niskie PaO2, np. na wysokości, w hipowentylacji, zaburzeniach V/Q czy przecieku. Hipoksja anemiczna wynika z niedoboru czynnej hemoglobiny, np. w niedokrwistości lub zatruciu CO. Hipoksja krążeniowa wynika ze zbyt wolnego przepływu. Hipoksja histotoksyczna oznacza, że komórki nie mogą wykorzystać tlenu, np. przy blokadzie oksydazy cytochromowej przez cyjanki. Krew żylna jest wtedy nietypowo dobrze utlenowana.
Wraz z wysokością spada ciśnienie atmosferyczne, choć tlen nadal stanowi 21% powietrza. Na ok. 5500 m ciśnienie jest o połowę niższe niż nad morzem, a PO2 w pęcherzykach odpowiednio spada. Chemoreceptory obwodowe wyzwalają wtedy hiperwentylację. Obniża ona PaCO2 i wywołuje zasadowicę oddechową. Zasadowica hamuje chemoreceptory centralne i ogranicza dalszy wzrost wentylacji.