Pobudliwość to cecha, która odróżnia komórkę nerwową i mięśniową od reszty tkanek ustroju. Zrozumienie, skąd bierze się potencjał na błonie i co dzieje się w chwili jego odwrócenia, jest warunkiem pojęcia większości zjawisk fizjologicznych opisanych w dalszych rozdziałach - od pracy serca, przez odruchy, po skutki zaburzeń elektrolitowych obserwowane przy łóżku pacjenta.
Pobudliwość - czym jest i od czego zależy
Pobudliwość to zdolność komórki do odpowiedzi na bodziec zmianą potencjału błony komórkowej. Tkankami pobudliwymi są tkanka nerwowa, wszystkie trzy rodzaje tkanki mięśniowej oraz część komórek gruczołowych. Ich wspólną cechą jest obecność w błonie kanałów jonowych bramkowanych napięciem, czyli otwierających się w odpowiedzi na zmianę różnicy potencjałów.
Bodźce działające na komórkę pobudliwą dzieli się na trzy rodzaje. Bodziec podprogowy wywołuje jedynie niewielką, miejscową i wygaszającą się zmianę potencjału, bez powstania impulsu. Bodziec progowy to najmniejszy bodziec zdolny wywołać potencjał czynnościowy. Bodziec nadprogowy przekracza tę wartość, ale nie powoduje silniejszej odpowiedzi pojedynczej komórki.
Wynika to z prawa "wszystko albo nic": pojedyncza komórka pobudliwa odpowiada na bodziec progowy i każdy silniejszy zawsze tak samo, pełnym potencjałem czynnościowym o stałej amplitudzie. Siła bodźca nie jest więc kodowana wysokością impulsu, lecz częstotliwością impulsów oraz liczbą zaangażowanych włókien. Prawo to dotyczy pojedynczej komórki oraz mięśnia sercowego jako całości (dzięki połączeniom typu neksus), natomiast cały mięsień szkieletowy odpowiada stopniowalnie, bo tworzą go jednostki motoryczne o różnym progu pobudzenia.
Do opisu pobudliwości służą dwie klasyczne miary. Reobaza to najmniejsze natężenie prądu zdolne wywołać pobudzenie przy dowolnie długim czasie działania. Chronaksja to czas, przez jaki musi działać prąd o natężeniu dwukrotnej reobazy, aby wywołać pobudzenie. Im krótsza chronaksja, tym większa pobudliwość tkanki.
Potencjał spoczynkowy błony
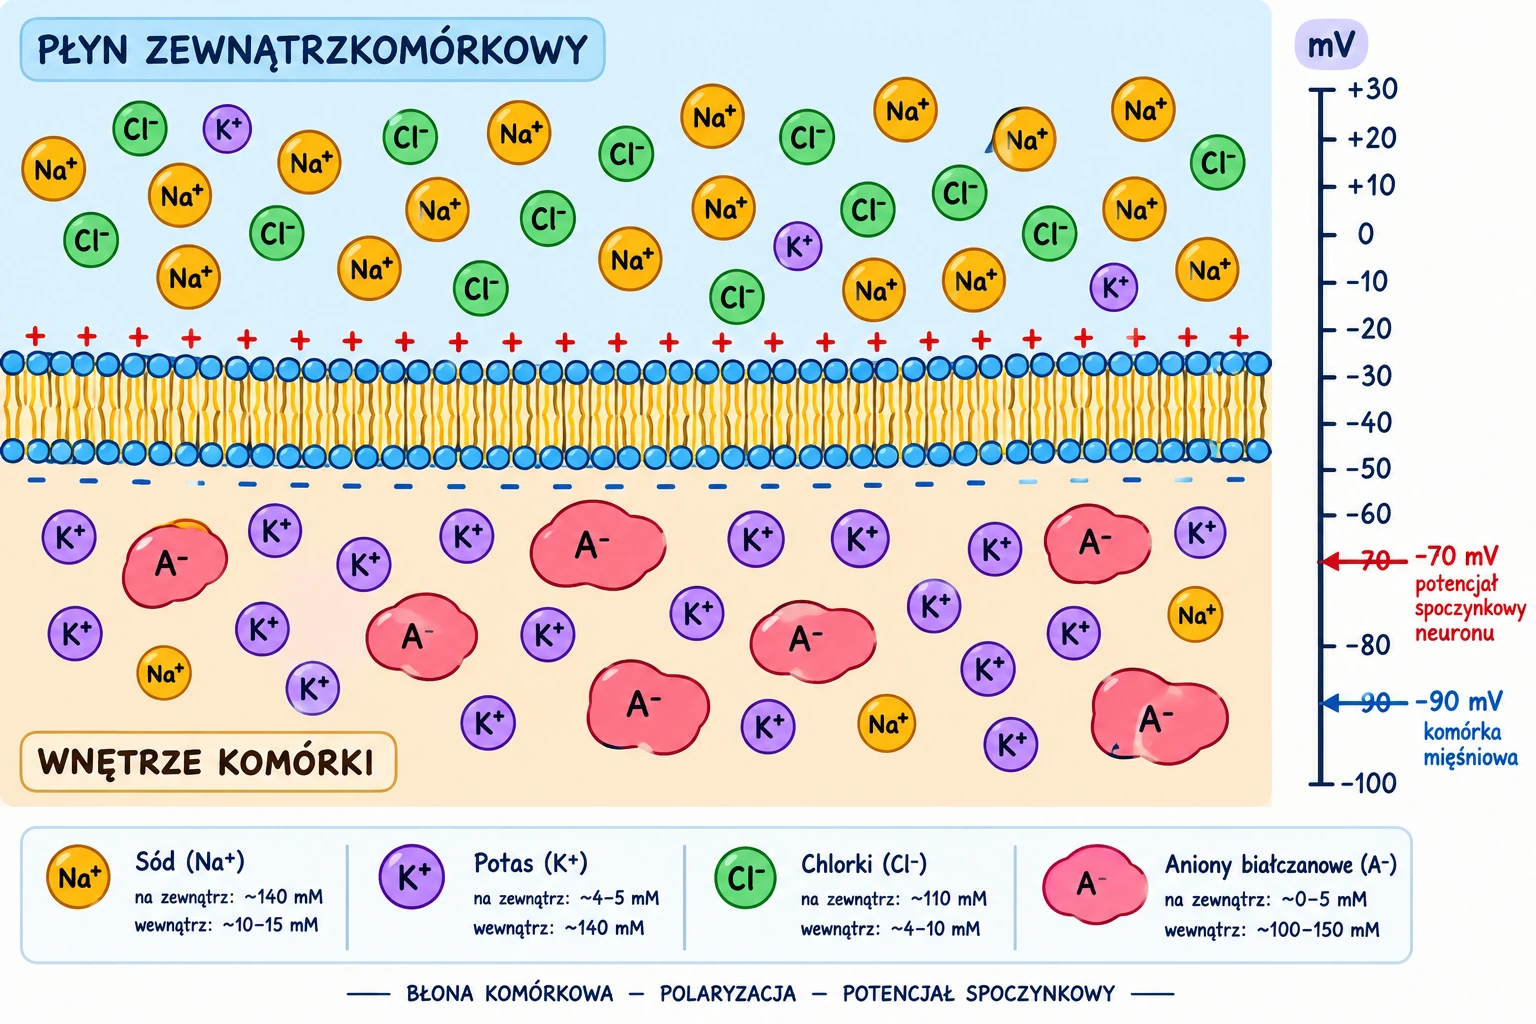
Błona komórki w spoczynku jest spolaryzowana: jej wnętrze jest naładowane ujemnie w stosunku do płynu zewnątrzkomórkowego. Dla neuronu potencjał spoczynkowy wynosi około -70 mV, dla komórki mięśnia szkieletowego i kardiomiocytu roboczego około -90 mV.
Źródłem tej różnicy jest nierównomierny rozkład jonów po obu stronach błony. Wewnątrz komórki dominuje potas oraz nieprzepuszczalne przez błonę aniony białczanowe i fosforanowe. Na zewnątrz przeważa sód i chlor. Stężenie potasu w komórce jest około trzydziestokrotnie wyższe niż w osoczu, stężenie sodu odwrotnie - kilkanaście razy wyższe na zewnątrz.
O wartości potencjału spoczynkowego decyduje przede wszystkim potas, ponieważ błona w spoczynku jest dla niego wielokrotnie bardziej przepuszczalna niż dla sodu. Potas wypływa zgodnie z gradientem stężeń, pozostawiając w komórce niezrównoważone ładunki ujemne. Wypływ zatrzymuje się, gdy narastający ładunek ujemny zaczyna przyciągać potas z powrotem. To właśnie dlatego zmiana stężenia potasu w osoczu przesuwa potencjał spoczynkowy, podczas gdy zmiana stężenia sodu praktycznie nie ma na niego wpływu.
Pompa sodowo-potasowa
Sam gradient stężeń zużywałby się z czasem, gdyby nie aktywny transport. Pompa sodowo-potasowa, czyli ATP-aza sodowo-potasowa, w jednym cyklu usuwa z komórki trzy jony sodu i wprowadza dwa jony potasu, rozkładając przy tym jedną cząsteczkę ATP.
Ma to dwa następstwa. Po pierwsze, pompa odtwarza gradienty stężeń zaburzane przez każdy potencjał czynnościowy. Po drugie, ponieważ wynosi trzy ładunki dodatnie, a wprowadza dwa, sama bezpośrednio zwiększa ujemność wnętrza komórki. Ten elektrogenny udział pompy odpowiada za kilka miliwoltów potencjału spoczynkowego.
Praca pompy pochłania znaczną część spoczynkowej przemiany materii, a w niektórych tkankach, jak nerka czy mózg, przeważającą jej część. Zahamowanie pompy - przez niedotlenienie, brak ATP lub glikozydy nasercowe - prowadzi do gromadzenia sodu w komórce, utraty potasu i stopniowej depolaryzacji błony.
Potencjał czynnościowy
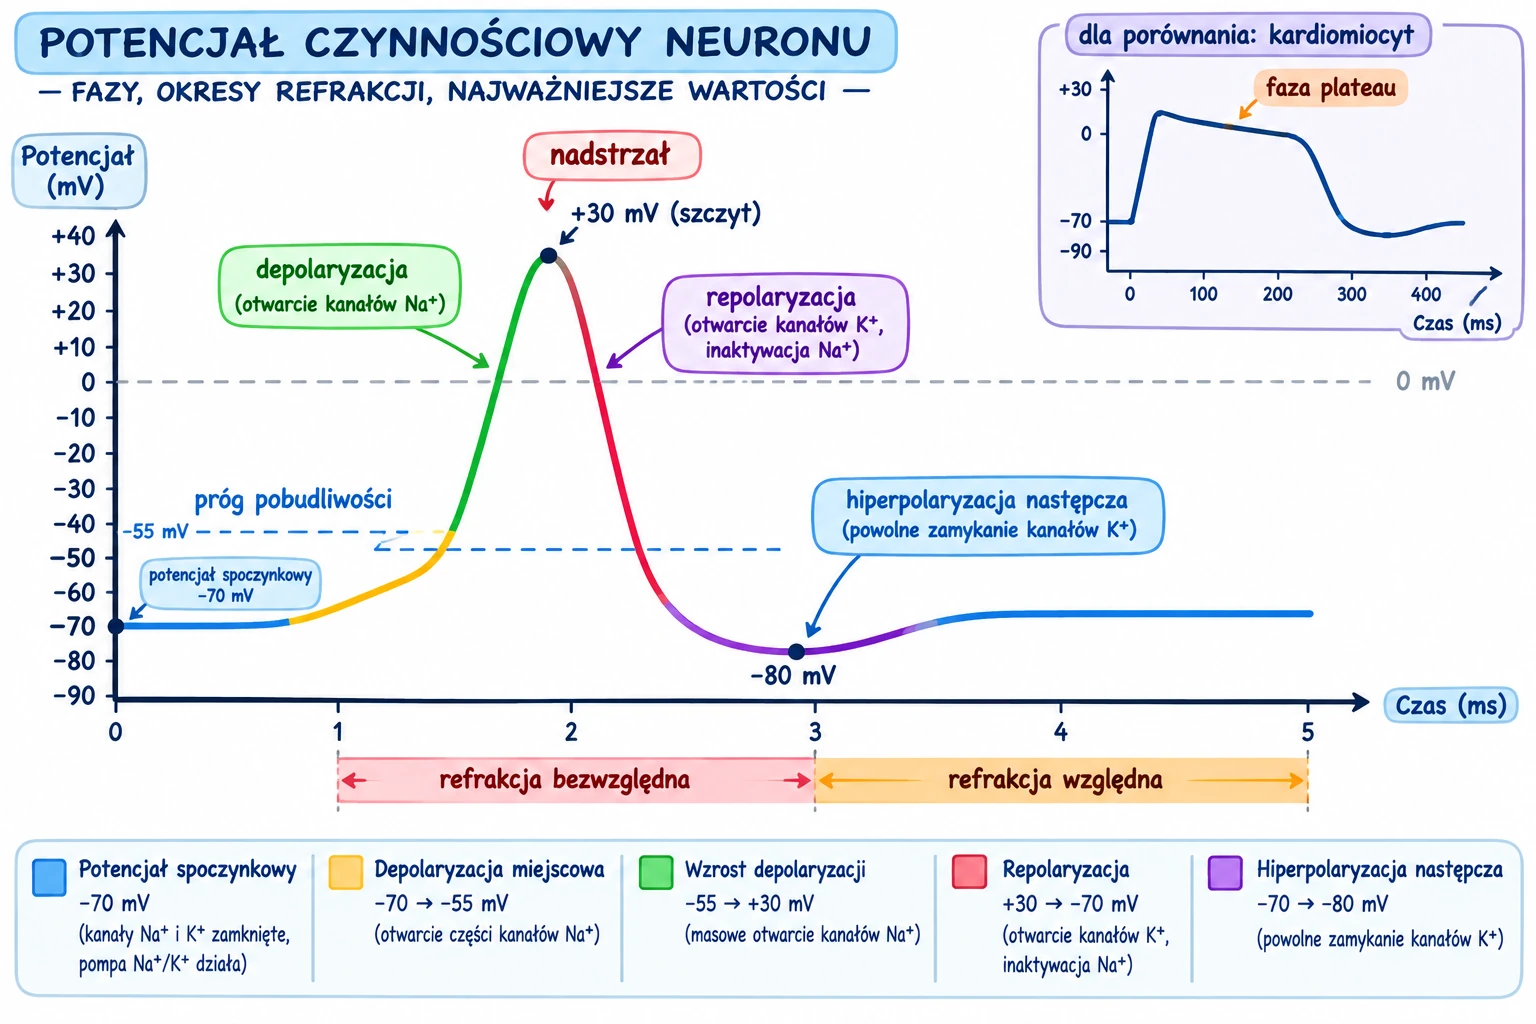
Potencjał czynnościowy to krótkotrwałe, odwracalne odwrócenie polaryzacji błony, przebiegające zawsze według tego samego schematu. Bodziec musi najpierw zdepolaryzować błonę do wartości progowej, wynoszącej dla neuronu około -55 mV. Poniżej progu zmiana wygasa, po jego przekroczeniu proces staje się samopodtrzymujący i niezależny od dalszego działania bodźca.
Całość trwa w komórce nerwowej około 1 ms, w mięśniu szkieletowym kilka milisekund, a w kardiomiocycie roboczym nawet 200-300 ms dzięki fazie plateau warunkowanej napływem wapnia. Ta różnica czasu trwania ma zasadnicze znaczenie kliniczne: tak długi potencjał czynnościowy uniemożliwia sumowanie skurczów serca i tym samym jego skurcz tężcowy.
Depolaryzacja i repolaryzacja
Po osiągnięciu progu gwałtownie otwierają się bramkowane napięciem kanały sodowe. Sód wpada do komórki zgodnie z gradientem stężeń i gradientem elektrycznym, a napływ ładunku dodatniego dodatkowo otwiera kolejne kanały sodowe - jest to mechanizm dodatniego sprzężenia zwrotnego, który nadaje narastaniu potencjału charakter wybuchowy. Potencjał przekracza zero i osiąga wartość dodatnią, około +30 mV. To przekroczenie wartości zerowej nosi nazwę nadstrzału.
Kanały sodowe zamykają się samoistnie po około 1 ms i przechodzą w stan inaktywacji. Z pewnym opóźnieniem otwierają się kanały potasowe, przez które potas wypływa z komórki, odtwarzając ujemny ładunek wnętrza. To faza repolaryzacji. Kanały potasowe zamykają się powoli, przez co potencjał na krótko spada poniżej wartości spoczynkowej - jest to hiperpolaryzacja następcza. Pierwotny rozkład jonów przywraca dopiero pompa sodowo-potasowa, już po zakończeniu impulsu.
Okres refrakcji
W czasie trwania potencjału czynnościowego i tuż po nim komórka nie odpowiada normalnie na kolejne bodźce.
W okresie refrakcji bezwzględnej żaden bodziec, nawet najsilniejszy, nie wywoła kolejnego potencjału czynnościowego, ponieważ kanały sodowe pozostają w stanie inaktywacji i nie mogą się ponownie otworzyć. W okresie refrakcji względnej, przypadającym na późną repolaryzację i hiperpolaryzację następczą, pobudzenie jest możliwe, ale wymaga bodźca silniejszego niż progowy.
Refrakcja pełni dwie funkcje: ogranicza maksymalną częstotliwość impulsów, jaką może przewodzić włókno, oraz zapewnia jednokierunkowość przewodzenia, bo odcinek błony właśnie pobudzony nie może zostać pobudzony ponownie przez impuls biegnący w tę samą stronę.
Przewodzenie impulsu wzdłuż włókna
Potencjał czynnościowy powstały w jednym miejscu błony depolaryzuje odcinek sąsiedni za pośrednictwem lokalnych prądów jonowych. Gdy depolaryzacja sąsiedniego odcinka osiągnie próg, powstaje tam nowy, pełny potencjał czynnościowy. Impuls nie płynie zatem wzdłuż włókna jak prąd w kablu - jest odtwarzany od nowa na każdym kolejnym odcinku błony, dzięki czemu nie traci amplitudy nawet na odcinku metra.
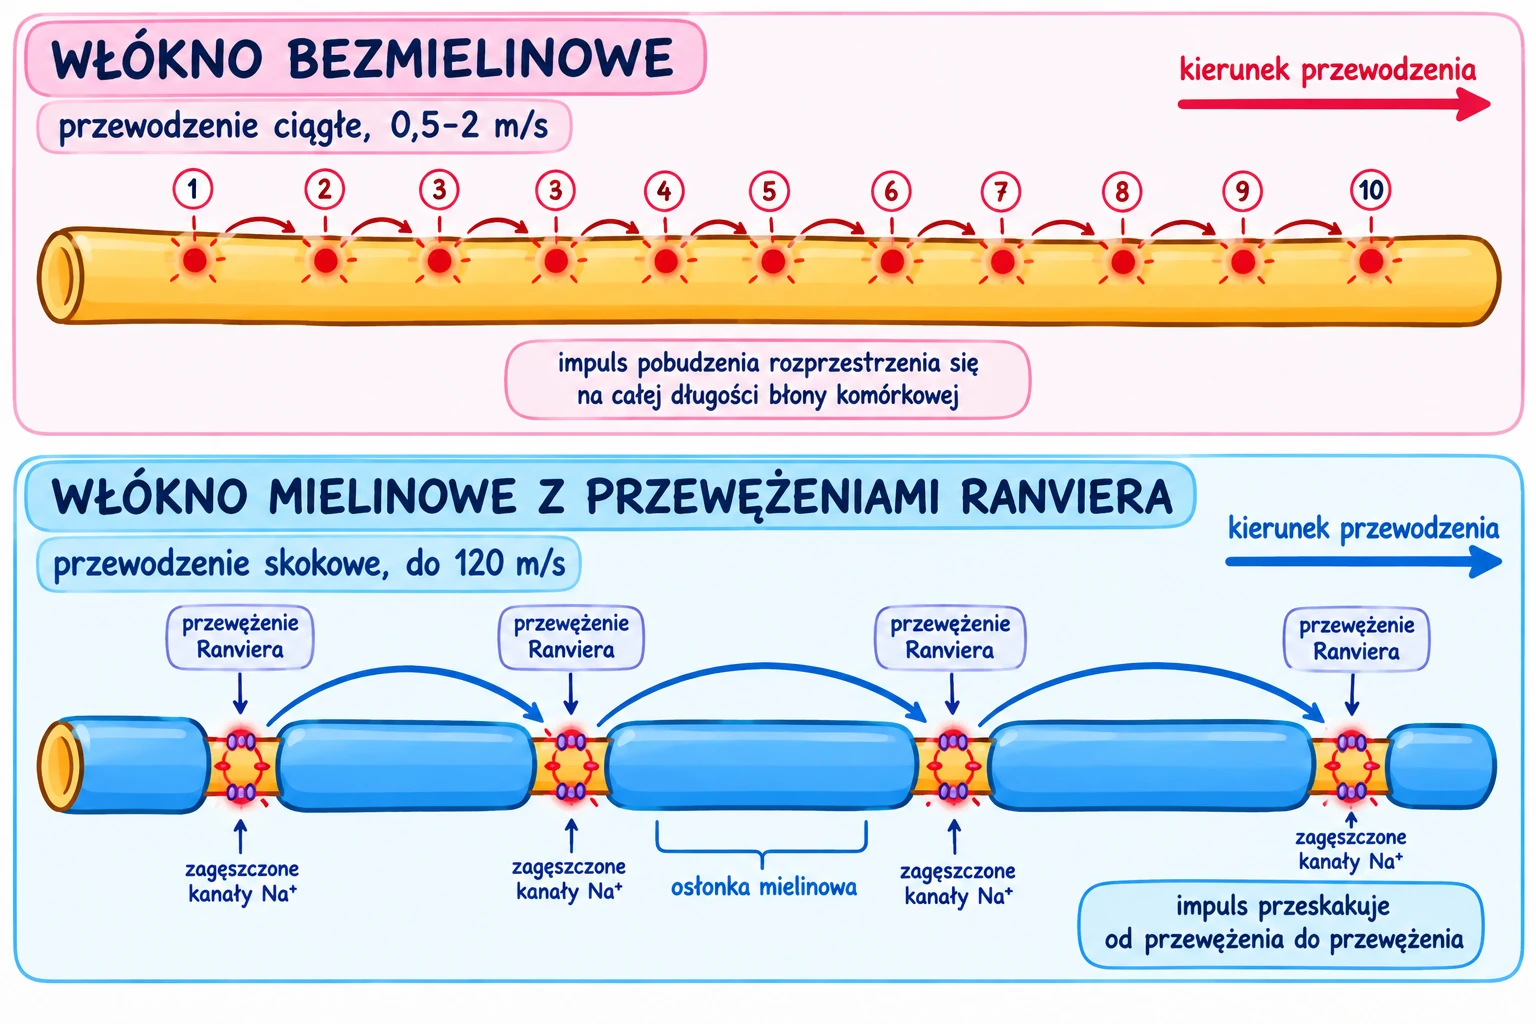
Szybkość przewodzenia zależy od dwóch cech włókna. Rośnie wraz ze średnicą, ponieważ grubsze włókno stawia mniejszy opór przepływowi prądu wzdłuż aksonu. Rośnie też wielokrotnie, gdy włókno jest pokryte osłonką mielinową. We włóknach bezmielinowych o małej średnicy przewodzenie zachodzi z szybkością około 0,5-2 m/s, w grubych włóknach mielinowych sięga 100-120 m/s.
Dalsza część artykułu jest dostępna w pakiecie
W pakiecie znajdziesz także pytania egzaminacyjne z wyjaśnieniami do tego tematu.
Osłonkę mielinową tworzą w obwodowym układzie nerwowym komórki Schwanna, a w ośrodkowym oligodendrocyty. Jest ona zbudowana głównie z lipidów i działa jak izolator elektryczny, uniemożliwiając przepływ jonów przez błonę na całej swojej długości.
Osłonka nie jest ciągła - przerywają ją co około 1-2 mm przewężenia Ranviera, w których błona aksonu styka się z płynem zewnątrzkomórkowym i gdzie skupiona jest ogromna liczba kanałów sodowych. Potencjał czynnościowy może powstać wyłącznie w przewężeniu, więc impuls przeskakuje z jednego przewężenia do następnego. To przewodzenie skokowe, inaczej saltatoryczne.
Daje ono dwie korzyści: wielokrotnie zwiększa szybkość przewodzenia oraz znacznie zmniejsza wydatek energetyczny, bo wymiana jonów zachodzi tylko na niewielkich odcinkach błony, a nie na całej jej powierzchni. Uszkodzenie osłonki, jak w stwardnieniu rozsianym czy zespole Guillaina-Barrego, spowalnia lub całkowicie blokuje przewodzenie, mimo że sam akson pozostaje nieuszkodzony.
Złącze nerwowo-mięśniowe
Złącze nerwowo-mięśniowe, nazywane też płytką motoryczną, to wyspecjalizowana synapsa między zakończeniem aksonu motoneuronu a błoną komórki mięśnia szkieletowego. Przekaźnictwo jest tu chemiczne i jednokierunkowe.
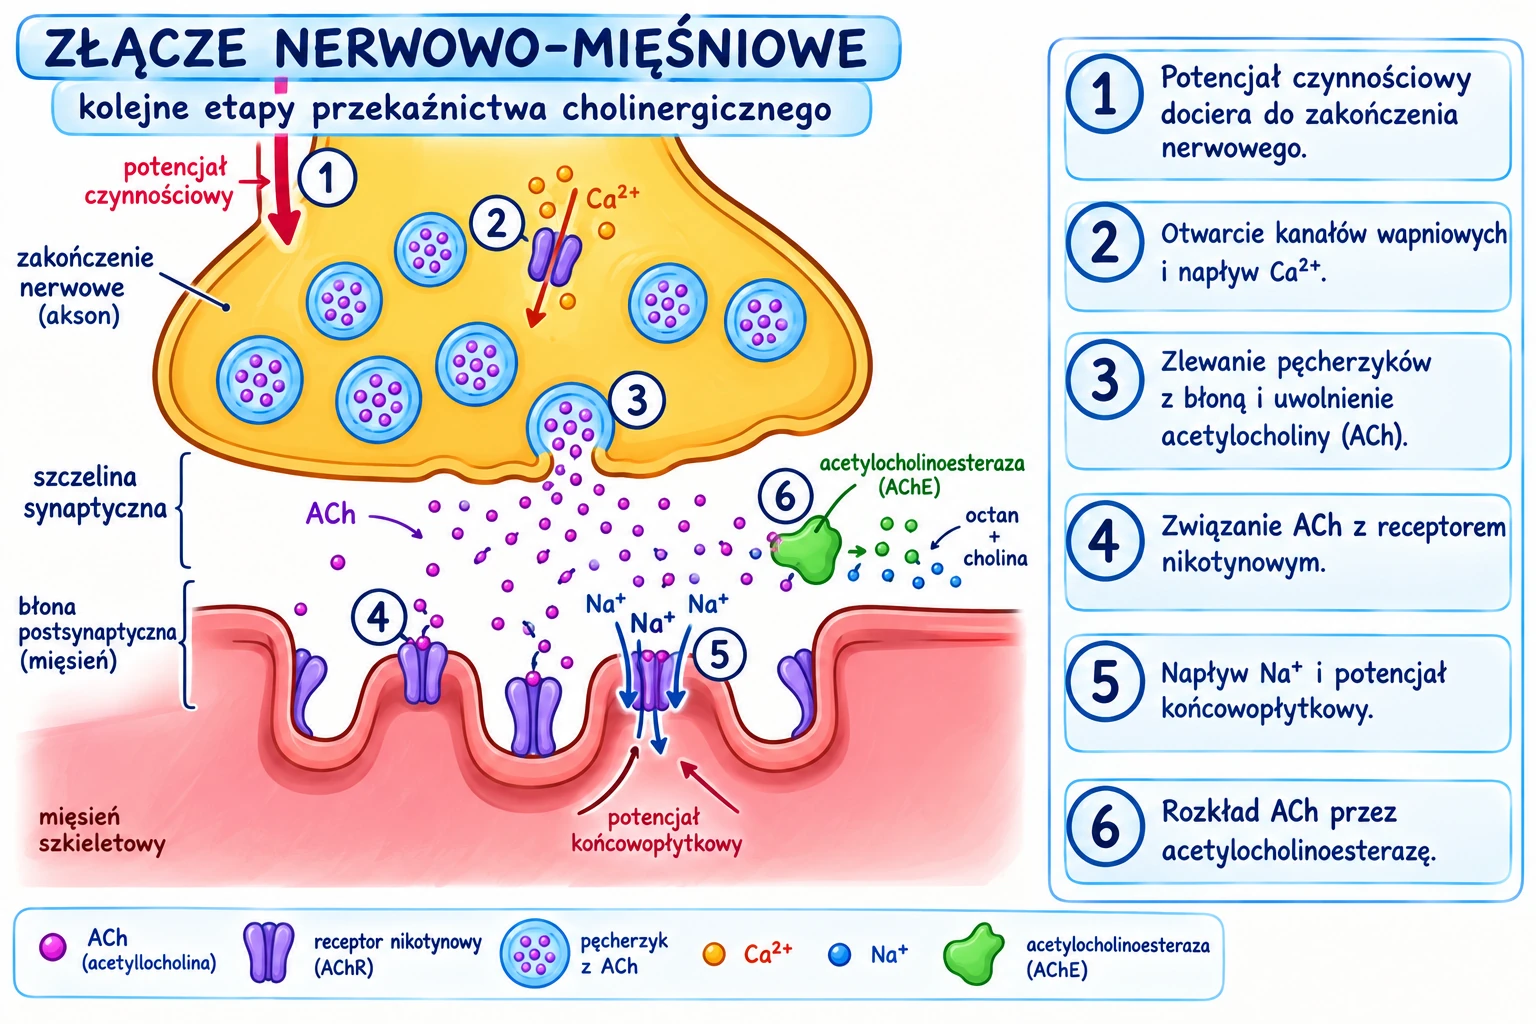
Sekwencja zdarzeń jest stała. Potencjał czynnościowy dociera do zakończenia nerwowego i otwiera w nim bramkowane napięciem kanały wapniowe. Napływ wapnia do kolbki synaptycznej uruchamia zlewanie się pęcherzyków synaptycznych z błoną presynaptyczną i uwolnienie acetylocholiny do szczeliny synaptycznej. Neuroprzekaźnik dyfunduje przez szczelinę i wiąże się z receptorami błony postsynaptycznej.
Warto zauważyć, że wapń jest tu konieczny na samym początku procesu - bez jego napływu do zakończenia nerwowego acetylocholina w ogóle nie zostanie uwolniona. To ten sam jon, który później uruchamia skurcz wewnątrz komórki mięśniowej, ale działa w zupełnie innym miejscu i pochodzi z innego źródła.
Acetylocholina i receptor nikotynowy
Receptorem błony postsynaptycznej płytki motorycznej jest receptor nikotynowy, czyli kanał jonowy otwierany przez związanie dwóch cząsteczek acetylocholiny. Jego otwarcie powoduje napływ sodu i powstanie potencjału końcowopłytkowego. Jeżeli osiągnie on wartość progową, na błonie komórki mięśniowej powstaje pełny potencjał czynnościowy, który rozchodzi się po całej jej powierzchni.
W warunkach prawidłowych ilość uwalnianej acetylocholiny jest wielokrotnie większa niż minimum potrzebne do pobudzenia. Ten zapas bezpieczeństwa sprawia, że przewodzenie przez płytkę jest niezawodne, i tłumaczy, dlaczego objawy miastenii pojawiają się dopiero po zniszczeniu znacznej części receptorów.
Acetylocholina jest natychmiast rozkładana w szczelinie przez acetylocholinoesterazę na cholinę i octan. Bez tego rozkładu receptor pozostawałby pobudzony, a błona zdepolaryzowana i niezdolna do kolejnej odpowiedzi. Zahamowanie tego enzymu - lecznicze w miastenii, toksyczne w zatruciu związkami fosforoorganicznymi - przedłuża i nasila działanie acetylocholiny.
Sprzężenie elektromechaniczne i skurcz
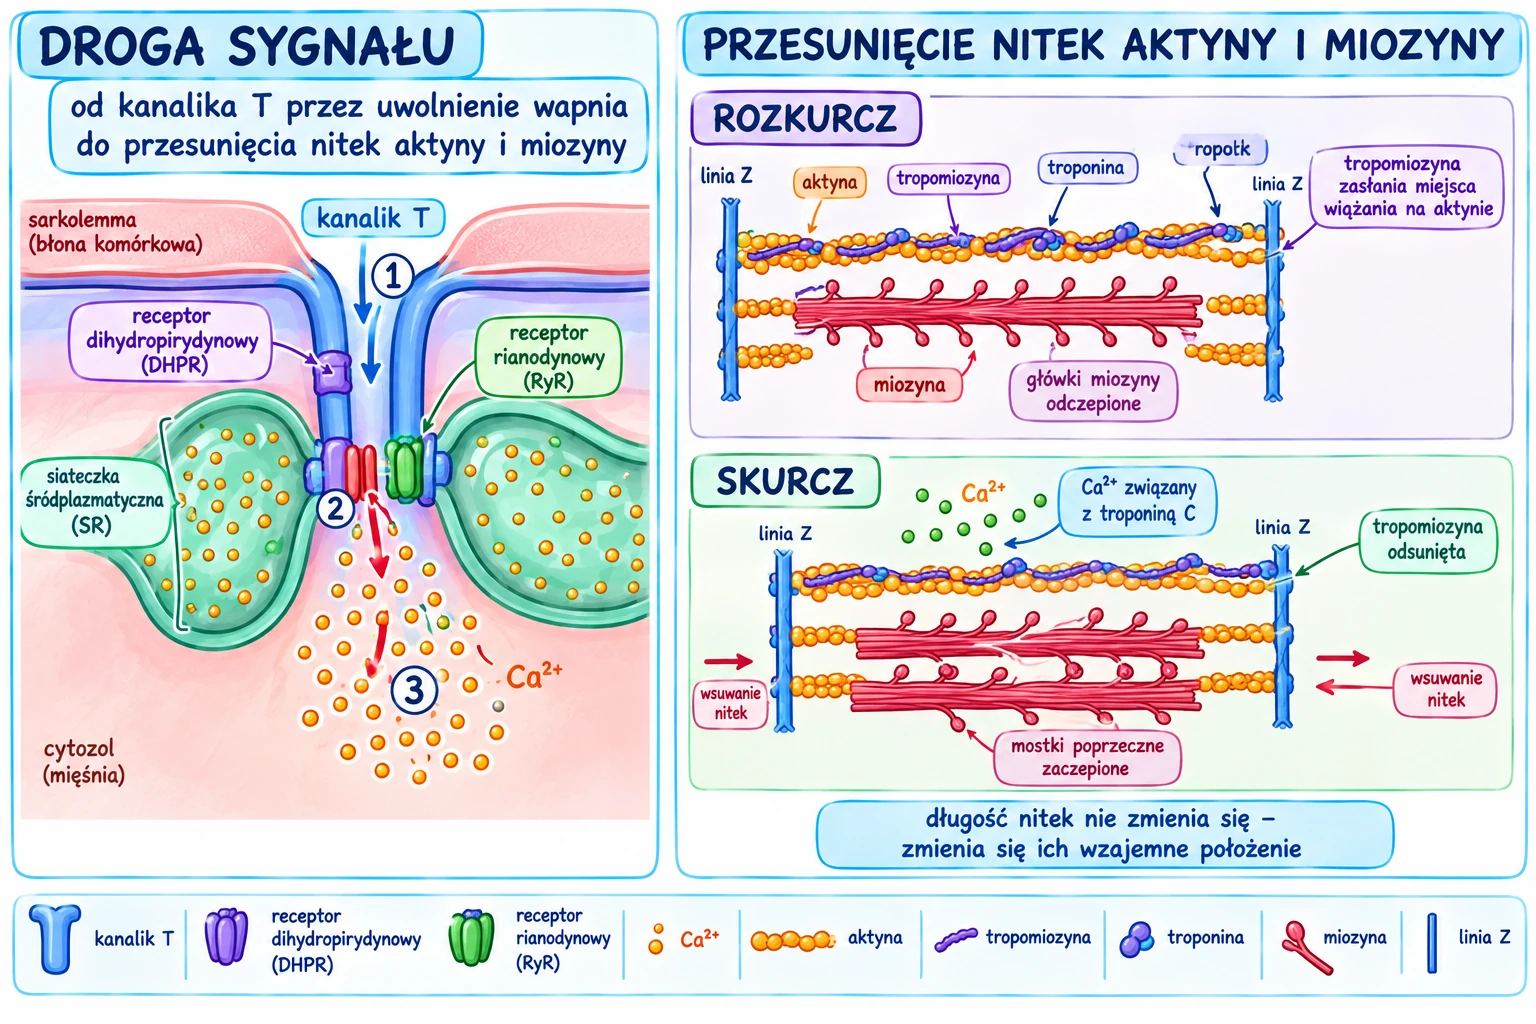
Sprzężeniem elektromechanicznym nazywa się ciąg zdarzeń łączący potencjał czynnościowy błony komórki mięśniowej z mechanicznym skróceniem włókna.
Potencjał czynnościowy wnika w głąb komórki przez kanaliki poprzeczne T, czyli wpuklenia błony komórkowej sięgające do sąsiedztwa siateczki śródplazmatycznej. Zmiana potencjału w kanaliku T zostaje wykryta przez receptor dihydropirydynowy, który mechanicznie otwiera receptor rianodynowy siateczki. Z jej zbiorników wapń wylewa się do cytoplazmy, a jego stężenie wzrasta gwałtownie o kilka rzędów wielkości.
Wapń wiąże się z troponiną C. Kompleks troponinowo-tropomiozynowy zmienia położenie i odsłania na aktynie miejsca wiązania dla główek miozyny. Powstają mostki poprzeczne, a ich cykliczne zaczepianie, obrót i odczepianie wsuwa nitki aktyny między nitki miozyny. Sarkomer skraca się, choć długość samych nitek pozostaje niezmieniona - na tym polega teoria ślizgowa skurczu.
Rola wapnia i ATP
ATP jest w tym procesie potrzebne w trzech miejscach, co warto rozdzielić. Napędza obrót główki miozyny, czyli sam ruch roboczy. Jest niezbędne do odczepienia główki od aktyny po wykonaniu ruchu. Zasila też pompę wapniową siateczki śródplazmatycznej, która po zakończeniu bodźca wtłacza wapń z powrotem do zbiorników i doprowadza do rozkurczu.
Rozkurcz jest więc procesem czynnym, wymagającym energii, a nie biernym powrotem do stanu wyjściowego. Najlepiej ilustruje to stężenie pośmiertne: po ustaniu wytwarzania ATP główki miozyny pozostają trwale połączone z aktyną i mięsień nie może się rozluźnić.
Rodzaje skurczów mięśnia
Ze względu na zmianę długości i napięcia wyróżnia się trzy rodzaje skurczu. Skurcz izotoniczny to skrócenie mięśnia przy stałym napięciu, na przykład przy swobodnym uniesieniu lekkiego przedmiotu. Skurcz izometryczny to wzrost napięcia bez zmiany długości, jak przy próbie podniesienia nieruchomego ciężaru lub przy utrzymywaniu postawy. Skurcz auksotoniczny łączy obie cechy i jest w ruchach dowolnych najczęstszy.
Ze względu na częstotliwość bodźców wyróżnia się skurcz pojedynczy oraz skurcze sumowane. Jeżeli kolejny bodziec trafia na mięsień w fazie rozkurczu, skurcze sumują się częściowo i powstaje skurcz tężcowy niezupełny, o falistym zapisie. Jeżeli częstotliwość bodźców jest tak duża, że mięsień nie zdąży się rozkurczyć, powstaje skurcz tężcowy zupełny, o zapisie gładkim i sile nawet kilkakrotnie większej niż skurcz pojedynczy. Fizjologiczna praca mięśni szkieletowych opiera się właśnie na skurczach tężcowych.
Sumowanie jest możliwe dlatego, że potencjał czynnościowy mięśnia szkieletowego trwa kilka milisekund, a sam skurcz kilkadziesiąt - refrakcja kończy się więc na długo przed rozkurczem. W mięśniu sercowym, gdzie potencjał czynnościowy i refrakcja obejmują niemal cały czas skurczu, sumowanie jest niemożliwe, co chroni serce przed zatrzymaniem w skurczu.
Wpływ jonów na pobudliwość
Skład jonowy płynu zewnątrzkomórkowego bezpośrednio przekłada się na pobudliwość komórek nerwowych i mięśniowych. Jest to jedno z najważniejszych powiązań fizjologii z praktyką kliniczną, bo tłumaczy objawy zaburzeń elektrolitowych, z którymi pielęgniarka spotyka się codziennie.
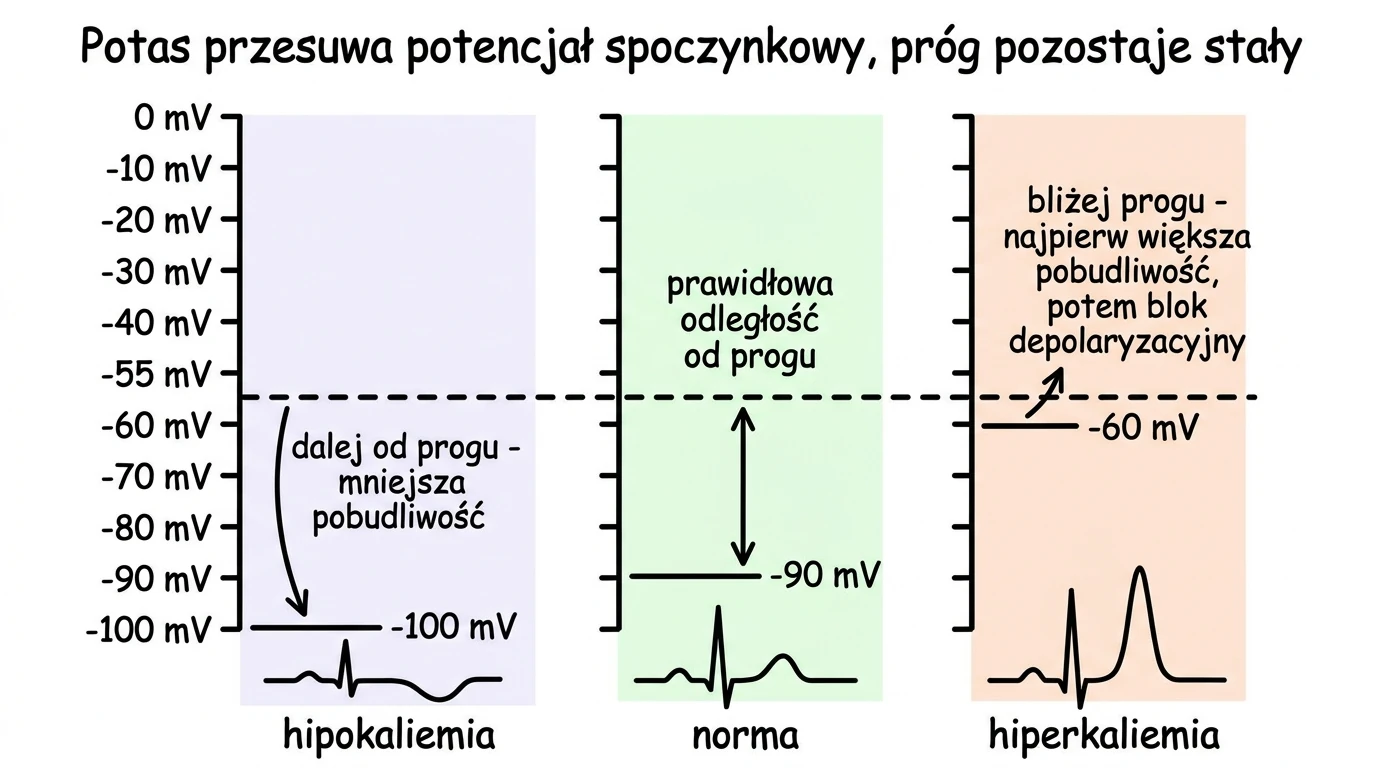
Obowiązuje prosta zasada: potas zmienia przede wszystkim położenie potencjału spoczynkowego, natomiast wapń i magnez zmieniają położenie progu pobudliwości.
Potas - hipo- i hiperkaliemia
W hiperkaliemii wzrost stężenia potasu na zewnątrz komórki zmniejsza jego wypływ, przez co potencjał spoczynkowy staje się mniej ujemny, czyli przesuwa się w stronę progu. Początkowo zwiększa to pobudliwość, ale przy dalszym narastaniu stężenia trwała depolaryzacja utrzymuje kanały sodowe w stanie inaktywacji i komórka przestaje odpowiadać na bodźce. Jest to blok depolaryzacyjny. W sercu prowadzi on do zwolnienia przewodzenia, zaburzeń rytmu i zatrzymania krążenia w rozkurczu. W zapisie EKG typowo pojawiają się wysokie, spiczaste załamki T, potem poszerzenie zespołów QRS.
W hipokaliemii wypływ potasu nasila się, błona ulega hiperpolaryzacji i oddala od progu. Pobudliwość maleje, co objawia się osłabieniem siły mięśniowej, zaparciem i osłabieniem odruchów, a w sercu paradoksalnie sprzyja zaburzeniom rytmu i nasila toksyczność glikozydów naparstnicy. Charakterystyczne dla zapisu EKG jest spłaszczenie załamka T i pojawienie się załamka U.
Wapń i magnez - tężyczka
Wapń zewnątrzkomórkowy stabilizuje błonę komórkową, podnosząc próg pobudliwości. W hipokalcemii próg obniża się i zbliża do potencjału spoczynkowego, przez co komórki stają się nadmiernie pobudliwe, a impulsy powstają samoistnie. Klinicznie odpowiada to tężyczce z mrowieniem wokół ust i w palcach, skurczem ręki położnika oraz dodatnim objawem Chvostka i objawem Trousseau. Hiperkalcemia działa odwrotnie: podnosi próg, zmniejsza pobudliwość i powoduje osłabienie mięśni, zaparcie i senność.
Magnez działa na pobudliwość podobnie jak wapń, a dodatkowo hamuje presynaptyczne uwalnianie acetylocholiny. Niedobór magnezu nasila objawy tężyczkowe i sprawia, że nie ustępują one po samej podaży wapnia - to częsta przyczyna opornej hipokalcemii. Nadmiar magnezu, na przykład w leczeniu stanu przedrzucawkowego, osłabia przewodnictwo nerwowo-mięśniowe, dlatego zanik odruchu kolanowego jest wczesnym objawem ostrzegawczym przedawkowania.
Zaburzenia przewodnictwa w praktyce
Znajomość kolejnych etapów przewodzenia pozwala uporządkować przyczyny osłabienia siły mięśniowej według miejsca uszkodzenia. Może ono dotyczyć osłonki mielinowej, jak w stwardnieniu rozsianym i zespole Guillaina-Barrego, samego aksonu, jak w polineuropatii cukrzycowej, złącza nerwowo-mięśniowego lub wreszcie komórki mięśniowej, jak w miopatiach.
Osobną grupę stanowią substancje działające na płytkę motoryczną. Jad kiełbasiany blokuje uwalnianie acetylocholiny z zakończenia nerwowego, powodując wiotkie porażenie. Związki fosforoorganiczne hamują acetylocholinoesterazę, wywołując przedłużoną depolaryzację płytki i objawy cholinergiczne.
Miastenia i leki zwiotczające
Miastenia rzekomoporaźna to choroba autoimmunologiczna, w której przeciwciała niszczą receptory nikotynowe błony postsynaptycznej. Liczba czynnych receptorów maleje, zapas bezpieczeństwa przewodzenia zostaje wyczerpany i pojawia się objaw osiowy: nużliwość mięśni, czyli narastanie osłabienia w miarę wysiłku i ustępowanie po odpoczynku. Objawy nasilają się wieczorem, typowo zaczynając od opadania powiek i podwójnego widzenia. Leczenie objawowe polega na hamowaniu acetylocholinoesterazy, najczęściej pirydostygminą, co wydłuża czas działania acetylocholiny na pozostałe receptory.
Leki zwiotczające stosowane w anestezjologii działają na ten sam receptor w dwojaki sposób. Środki niedepolaryzujące, takie jak rokuronium i wekuronium, konkurują z acetylocholiną o receptor i blokują go, nie wywołując pobudzenia. Ich działanie można odwrócić inhibitorem acetylocholinoesterazy lub swoistym antidotum. Środki depolaryzujące, przede wszystkim sukcynylocholina, pobudzają receptor i utrzymują błonę w stanie trwałej depolaryzacji, co po krótkim okresie drżeń pęczkowych daje zwiotczenie typu bloku depolaryzacyjnego. Ich działania nie odwraca się inhibitorem, który je wręcz nasila.